- Объяснить значения терминов haploid (n) (гаплоидный) и diploid (2n) (диплоидный)
- Объяснить, что означает термин homologous pairs (гомологичные пары) хромосом
- Объяснить необходимость reduction division (редукционного деления) во время meiosis (мейоза) при образовании gametes (гамет)
- Описать поведение хромосом в растительных и животных клетках во время мейоза и связанное с этим поведение ядерной оболочки, клеточной мембраны и веретена деления (ожидается знание названий основных стадий мейоза, но не подразделений профазы I: профаза I, метафаза I, анафаза I, телофаза I, профаза II, метафаза II, анафаза II и телофаза II)
- Интерпретировать фото- и электронномикроскопические снимки клеток на различных стадиях мейоза и определять основные стадии мейоза
- объяснить, что кроссинговер и случайная ориентация (независимое расхождение) пар гомологичных хромосом и сестринских хроматид во время мейоза приводит к образованию генетически различных гамет
- объяснить, что случайное слияние гамет при оплодотворении приводит к образованию генетически различных особей
Наследование
A-Level Biology · Тема 16
 9:35
Генетика
У вас двадцать три пары хромосом. При образовании гаметы каждая пара выстраивается независимо — в любом порядке, — поэтому количество различных гамет, которые вы…
Озвучивание на английском · переключаемые субтитры на английском и китайском языках
16.1
Мейоз и образование генетического разнообразия
Программа
Источник: Программа Cambridge International
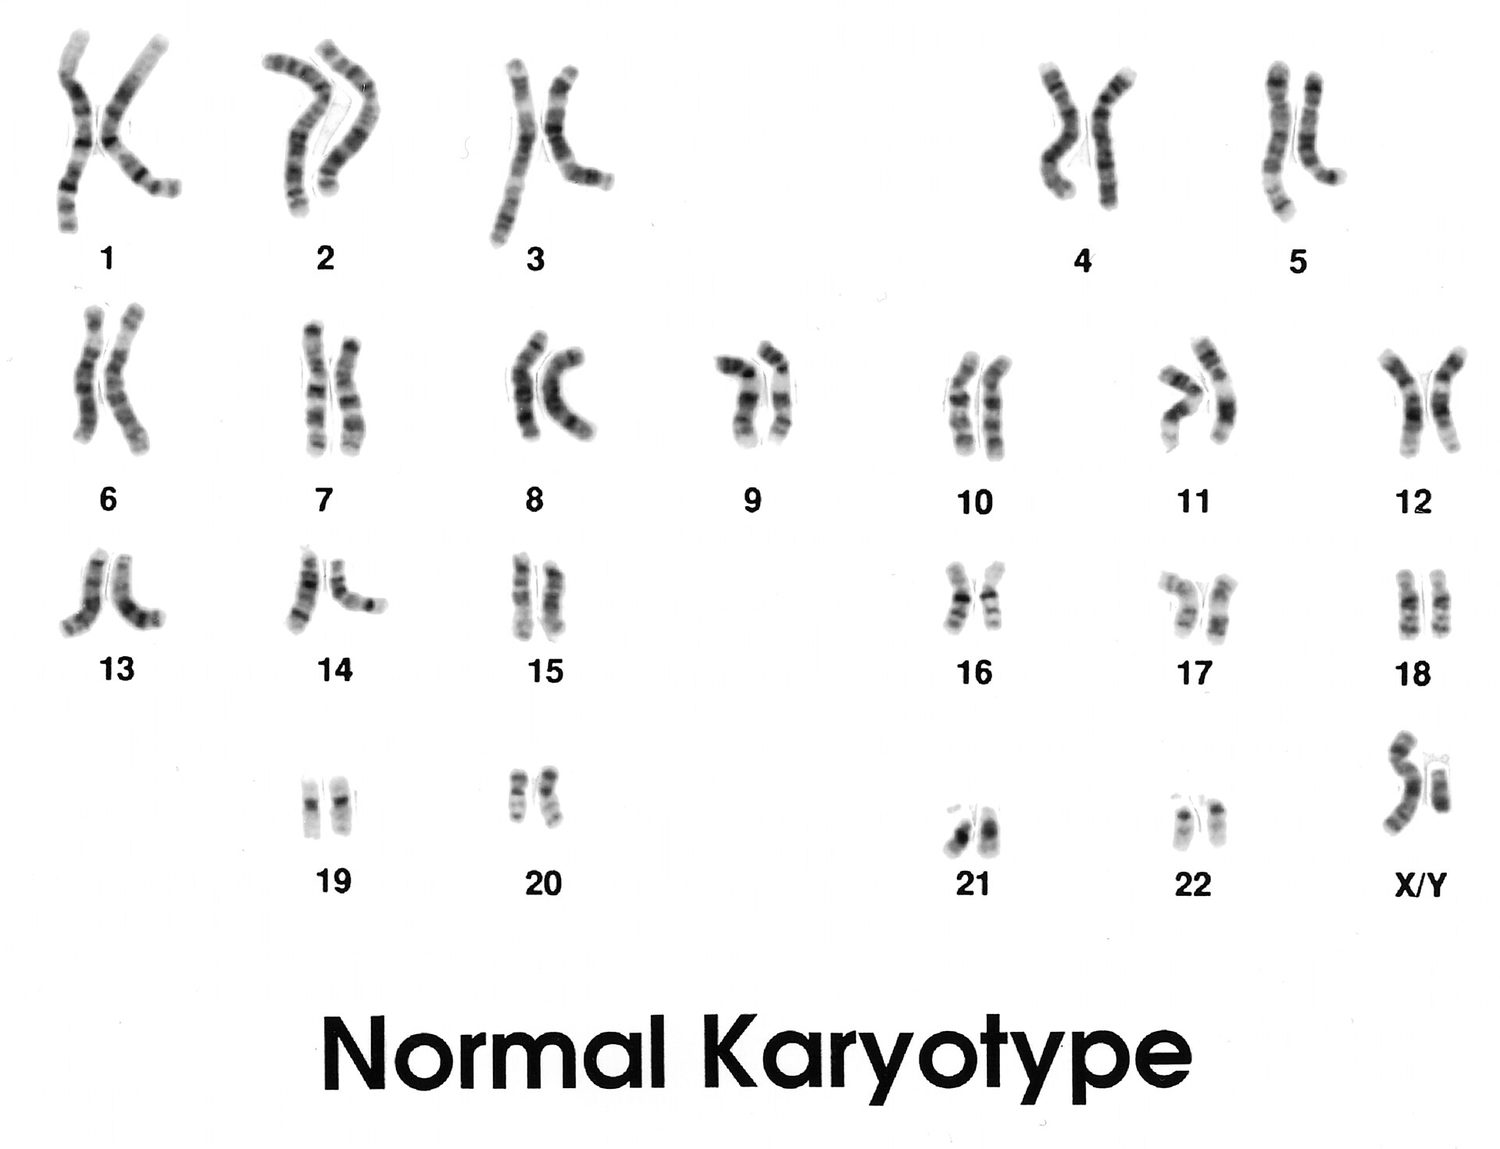
Диплоидная клетка (2n) имеет два полных набора хромосом — по одному набору от каждого родителя. Гаплоидная клетка (n) имеет только один набор.
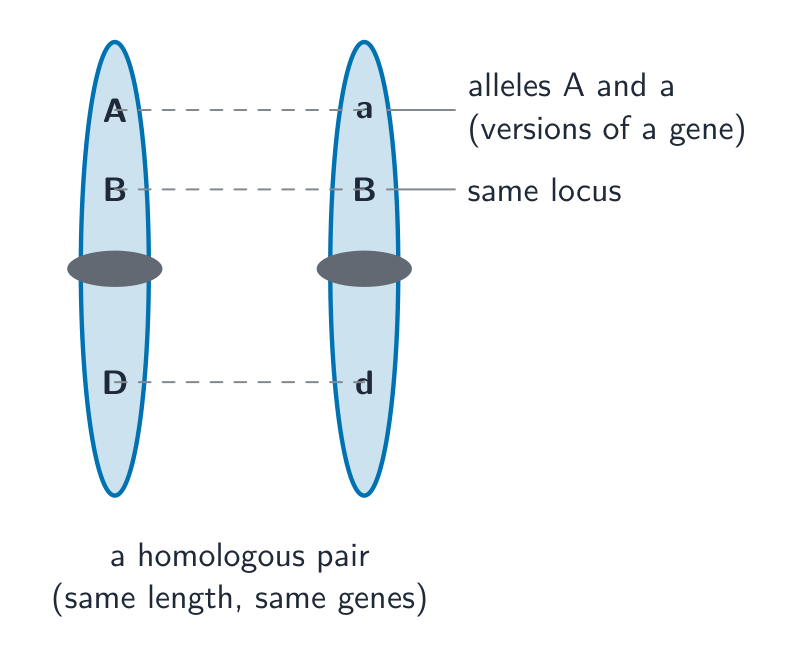
Хромосомы существуют парами гомологичных хромосом: две хромосомы в паре одинаковой длины и несут одни и те же гены (хотя они могут иметь разные их варианты).
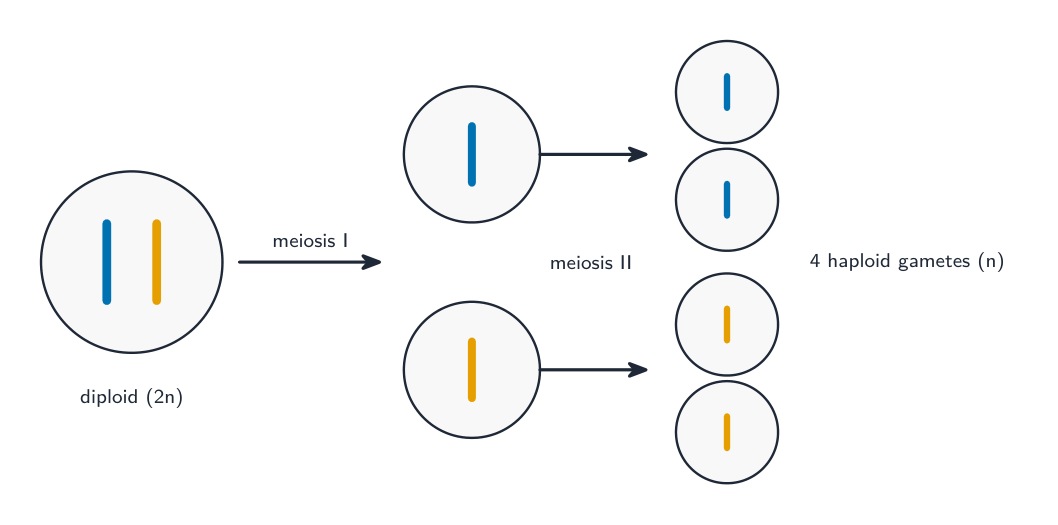
Гаметы (половые клетки) должны быть гаплоидными. Если бы они были диплоидными, число хромосом удваивалось бы при каждом поколении. Поэтому гаметы образуются посредством специального деления — мейоза, который уменьшает число хромосом вдвое.
Мейоз включает два деления, одно за другим, поэтому существует восемь названных стадий: профаза I, метафаза I, анафаза I и телофаза I, затем профаза II, метафаза II, анафаза II и телофаза II. Как и при митозе, ядерная оболочка разрушается, формируется веретено деления, и хромосомы перемещаются с помощью веретена.
Этапы мейоза пошагово
Перед началом мейоза каждая хромосома копируется в интерфазе, поэтому она состоит из двух идентичных сестринских хроматид, соединенных в центромере.
| Этап | Что происходит с хромосомами |
|---|---|
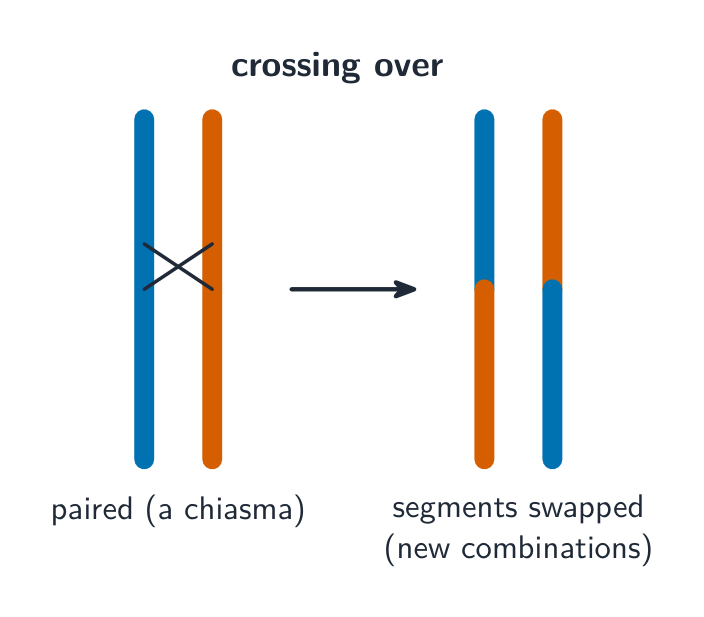
| профаза I | хромосомы сплющиваются; каждая гомологичная пара объединяется, образуя бивалент; кроссинговер происходит в точках, называемых хиазмами (одна точка — хиазма); ядерная оболочка разрушается, формируется веретено деления |
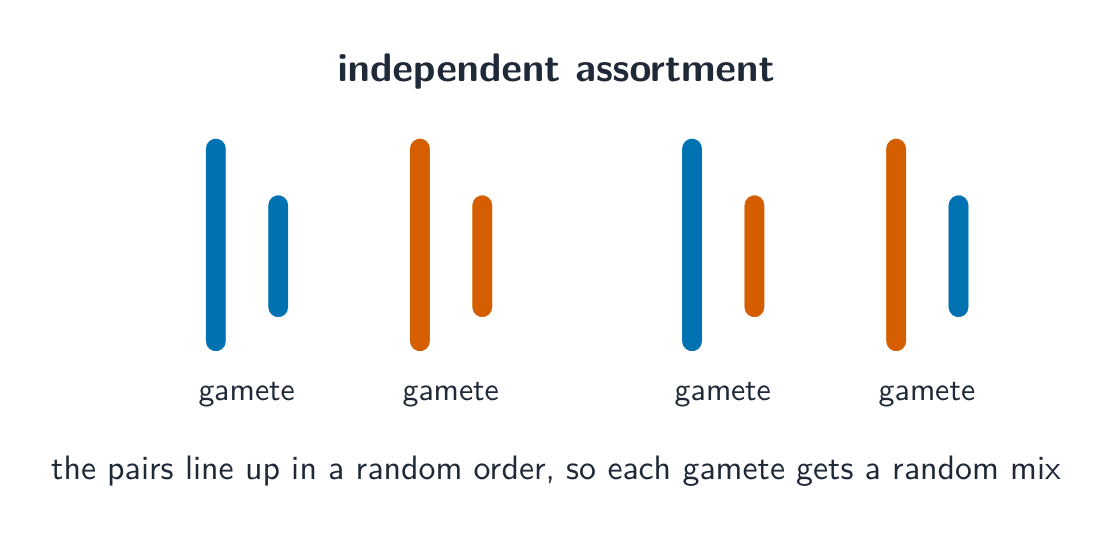
| метафаза I | биваленты выстраиваются на экваторе веретена; каждая пара ориентирована к полюсам случайным образом (независимое наследование) |
| анафаза I | две хромосомы каждой пары тянутся к противоположным полюсам; центромеры не делятся, поэтому каждая хромосома по-прежнему имеет две хроматиды |
| телофаза I | образуются два ядра, каждое гаплоидное (по одной хромосоме от каждой пары) |
| профаза II | хромосомы снова сплющиваются, формируются новые веретена деления |
| метафаза II | одиночные хромосомы выстраиваются на экваторе |
| анафаза II | центромеры делятся, и сестринские хроматиды тянутся к противоположным полюсам |
| телофаза II | образуются четыре гаплоидных ядра; цитоплазма делится, давая четыре клетки |
Таким образом, мейоз I разделяет гомологичные хромосомы (здесь происходит уменьшение числа), а мейоз II разделяет хроматиды, как при митозе.
Разобранный пример. Клетка имеет диплоидный набор 8 ($2n = 8$). Сколько хромосом и хроматид находится в каждой клетке на (a) метафазе I, (b) метафазе II, (c) конце телофазы II?
(a) Метафаза I: ничего еще не разделилось, поэтому 8 хромосом, каждая из которых содержит две хроматиды: 16 хроматид. (b) Метафаза II: мейоз I направил по одной хромосоме из каждой пары в каждую клетку, поэтому 4 хромосом, все еще содержащие по две хроматиды: 8 хроматид. (c) После телофазы II хроматиды разделились, поэтому каждая клетка содержит 4 хромосом, каждая из которых представляет собой одну хроматиду.
Мейоз делает гаметы генетически отличными друг от друга двумя способами:
- кроссинговер — гомологичные хромосомы обмениваются одинаковыми участками, смешивая аллели.
- независимое наследование — пары выстраиваются в случайном порядке, поэтому каждая гамета получает случайную смесь родительских хромосом.
Затем на стадии оплодотворения любая гамета может слиться с любой другой. Это случайное слияние делает каждого нового индивида генетически отличным.
Сколько комбинаций? При наличии $n$ пар гомологичных хромосом только независимое расхождение может дать $2^n$ различных комбинаций в гаметах. У человека 23 пары, поэтому один человек может образовать $2^{23}$ (около 8 миллионов) видов гамет, ещё до того, как кроссинговер увеличит их число. Два родителя могут дать $2^{23} \times 2^{23}$ (около 70 миллионов миллионов) различных комбинаций хромосом у своих детей.
Исследовать
Мейоз
Проанализируйте процесс. Два деления уменьшают число хромосом вдвое и перемешивают аллели, образуя четыре уникальных гаметы.
Словарь
Тренировать
| English | Русский |
|---|---|
| diploid/ˈdɪplɔɪd/ | диплоидный |
| chromosome/ˈkrəʊməsəʊm/ | хромосома |
| haploid/ˈhæplɔɪd/ | гаплоидный |
| gamete/ˈɡæmiːt/ | гамета |
| homologous chromosomes/həˈmɒləɡəs ˈkrəʊməsəʊmz/ | гомологичные хромосомы |
| gene/dʒiːn/ | ген |
| meiosis/meɪˈəʊsɪs/ | мейоз |
| nuclear envelope/ˈnjuːklɪə ˈenvələʊp/ | ядерная оболочка |
| spindle/ˈspɪndl/ | веретено деления |
| sister chromatids/ˈsɪstə ˈkrəʊmətɪdz/ | сестринские хроматиды |
| centromere/ˈsentrəʊmə/ | центромера |
| bivalent | двалент |
| chiasmata | хиазмы |
| equator/ɪˈkweɪtə/ | экватор |
| crossing over/ˈkrɒsɪŋ ˈəʊvə/ | кроссинговер |
| independent assortment/ˌɪndɪˈpendənt əˈsɔːtmənt/ | независимое расхождение |
| fertilisation/ˌfɜːtɪlaɪˈzeɪʃn/ | оплодотворение |
| protein/ˈprəʊtiːn/ | белок |
| locus/ˈləʊkəs/ | локус |
| allele/əˈliːl/ | аллель |
| dominant/ˈdɒmɪnənt/ | доминантный |
| recessive/rɪˈsesɪv/ | рецессивный |
| codominant/ˈkəʊdəmɪnənt/ | кодоминантный |
| genotype/ˈdʒenətaɪp/ | генотип |
| phenotype/ˈfenətaɪp/ | фенотип |
| homozygous/ˌhɒməˈzɪɡəs/ | гомозиготный |
| heterozygous/ˌhetrəˈzɪɡəs/ | гетерозиготный |
| test cross/test krɒs/ | анализирующее скрещивание |
16.1
Язык генетики
Вы должны знать эти термины точно:
- ген — это участок ДНК, кодирующий белок. Его положение на хромосоме называется локусом.
- аллель — это один вариант гена.
- доминантная аллель проявляет свой эффект даже при наличии одной копии; рецессивная аллель проявляется только при наличии двух копий.
- кодоминантные аллели оба проявляют свой эффект совместно.
- генотип — это аллели, которыми обладает организм; фенотип — видимые признаки.
- гомозиготность означает, что две аллели одинаковы; гетерозиготность означает, что они различны.
- анализирующее скрещивание скрещивает организм с рецессивной гомозиготой для определения его неизвестного генотипа.
Исследовать
Словарь терминов генетики
Сопоставьте каждое слово генетики с реальным признаком, который оно обозначает.
16.1
Генетические диаграммы и скрещивания
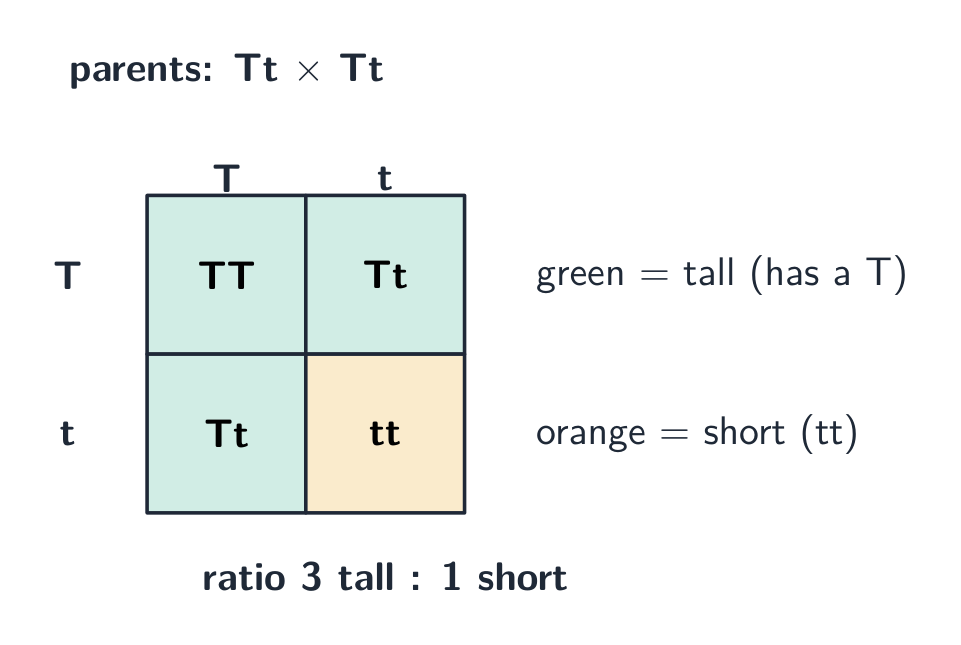
Скрещивание показывают с помощью генетической диаграммы, часто используя таблицу Пеннета — сетку, показывающую все возможные способы объединения гамет.
- моногибридное скрещивание прослеживает один ген; дигибридное скрещивание прослеживает два гена одновременно.
- у некоторых генов есть множественные аллели (более двух вариантов в популяции), например, аллели групп крови человека.
- при половой связи ген находится на X-хромосоме, поэтому результат различается у самцов и самок.
- при сцепленном наследовании гены на одной аутосоме (неполовой хромосоме) имеют тенденцию наследоваться вместе.
- при эпистазе один ген влияет на проявление другого гена.
Разобранные скрещивания
Кодоминирование. У растения аллели $\text{C}^\text{R}$ (красный цвет) и $\text{C}^\text{W}$ (белый цвет) кодоминантны: гетерозигота $\text{C}^\text{R}\text{C}^\text{W}$ имеет розовый цвет. Скрестим два розовых растения. Гаметы: $\text{C}^\text{R}$ или $\text{C}^\text{W}$ от каждого. Потомство: $\text{C}^\text{R}\text{C}^\text{R}$ (красное) : $\text{C}^\text{R}\text{C}^\text{W}$ (розовое) : $\text{C}^\text{W}\text{C}^\text{W}$ (белое) $= 1:2:1$. При кодоминировании каждому генотипу соответствует свой фенотип, поэтому соотношение не равно 3:1. Кодоминантные аллели записывают с помощью буквы гена и верхних индексов, а не прописных и строчных букв.
Множественные аллели. Ген группы крови ABO имеет три аллеля: $\text{I}^\text{A}$ и $\text{I}^\text{B}$ кодоминантны, а $\text{I}^\text{o}$ рецессивен по отношению к обоим. У мужчины с группой A ($\text{I}^\text{A}\text{I}^\text{o}$) и женщины с группой B ($\text{I}^\text{B}\text{I}^\text{o}$) могут родиться дети со всеми четырьмя группами: $\text{I}^\text{A}\text{I}^\text{B}$ (AB), $\text{I}^\text{A}\text{I}^\text{o}$ (A), $\text{I}^\text{B}\text{I}^\text{o}$ (B) и $\text{I}^\text{o}\text{I}^\text{o}$ (O), каждая с вероятностью $1/4$.
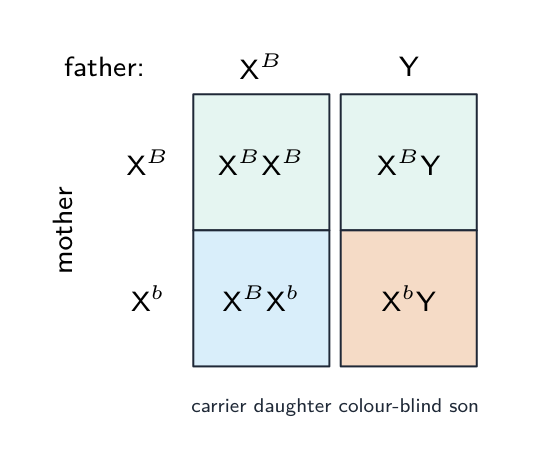
Сцепление с полом. Гемофилия вызывается рецессивным аллелем $\text{X}^\text{h}$ в X-хромосоме; Y-хромосома не несёт копии этого гена. Женщина-носительница ($\text{X}^\text{H}\text{X}^\text{h}$) и мужчина без гемофилии ($\text{X}^\text{H}\text{Y}$):
| Гаметы | $\text{X}^\text{H}$ (отец) | $\text{Y}$ (отец) |
|---|---|---|
| $\text{X}^\text{H}$ (мать) | $\text{X}^\text{H}\text{X}^\text{H}$ девочка, здорова | $\text{X}^\text{H}\text{Y}$ мальчик, здоров |
| $\text{X}^\text{h}$ (мать) | $\text{X}^\text{H}\text{X}^\text{h}$ девочка, носительница | $\text{X}^\text{h}\text{Y}$ мальчик, гемофилия |
Вероятность гемофилии у каждого сына составляет $1/2$; ни одна дочь не больна, но половина дочерей — носительницы. Для проявления заболевания мужчинам достаточно одного рецессивного аллеля, поскольку у них только одна X-хромосома; поэтому рецессивные заболевания, сцепленные с полом, гораздо чаще встречаются у мужчин. Отец передаёт свою X-хромосому всем дочерям и ни одному из сыновей.
Дигибридное скрещивание. У гороха круглая форма семян (R) доминирует над морщинистой (r), а жёлтая окраска (Y) — над зелёной (y); два гена находятся в разных хромосомах. Скрестим два растения, гетерозиготных по обоим генам: RrYy × RrYy. Каждый родитель образует четыре типа гамет в равных количествах, поскольку гены наследуются независимо: RY, Ry, rY и ry. Решётка Пеннета размером 4 × 4 даёт 16 комбинаций:
| Фенотип | Генотипы | Число из 16 |
|---|---|---|
| круглые, жёлтые | R_Y_ | 9 |
| круглые, зелёные | R_yy | 3 |
| морщинистые, жёлтые | rrY_ | 3 |
| морщинистые, зелёные | rryy | 1 |
Таким образом, соотношение равно 9:3:3:1. Дигибридное анализирующее скрещивание (RrYy × rryy) даёт соотношение 1:1:1:1.
Аутосомное сцепление. Если два гена расположены близко друг к другу в одной хромосоме, они не наследуются независимо: аллели одной хромосомы обычно попадают в одну гамету. Скрещивание, которое дало бы соотношение 9:3:3:1, в этом случае даёт преимущественно две родительские комбинации и лишь небольшое число рекомбинантных потомков — тех, которые возникают при кроссинговере между двумя локусами. Анализирующее скрещивание, дающее значительно больше 25% каждого родительского типа и значительно меньше новых комбинаций, показывает, что гены сцеплены.
Эпистаз. У мышей ген A определяет, образуется ли пигмент: A (пигмент образуется) доминирует над a (пигмент не образуется, белая окраска). Ген B определяет цвет пигмента: B (агути, серо-коричневая шерсть) доминирует над b (чёрная окраска). Мыши с генотипом aa белые независимо от их аллелей гена B: ген A эпистатичен по отношению к гену B. Скрещивание AaBb × AaBb даёт 9 A_B_ (агути), 3 A_bb (чёрные) и 4 aa (белые, независимо от аллелей B), поэтому соотношение равно 9:3:4 вместо 9:3:3:1. Другие формы эпистаза дают 9:7, 12:3:1 или 15:1. Дигибридное соотношение из 16 частей, отличающееся от 9:3:3:1, указывает на возможный эпистаз.
Исследовать
Моногибридное скрещивание
Установите генотипы каждого родителя и прочитайте потомство. Скрещивание двух гетерозигот (Aa × Aa) даёт классическое соотношение 3 : 1.
Словарь
Тренировать
| English | Русский |
|---|---|
| Punnett square/ˈpʌnɪt skweə/ | квадрат Пеннета |
| monohybrid cross/ˈmɒnəʊhaɪbrɪd krɒs/ | моногибридное скрещивание |
| dihybrid cross/daɪˈhaɪbrɪd krɒs/ | дигибридное скрещивание |
| multiple alleles/ˈmʌltɪpl əˈliːlz/ | множественные аллели |
| sex linkage/seks ˈlɪŋkɪdʒ/ | сцепление с полом |
| linkage/ˈlɪŋkɪdʒ/ | сцепление |
| autosome/ˈɔːtəʊsəʊm/ | аутосома |
| epistasis/ɪpɪˈstɑːsiz/ | эпистаз |
| chi-squared test/kaɪ skweəd test/ | критерий хи-квадрат |
| enzyme/ˈenzaɪm/ | фермент |
| albinism/ˈælbɪnɪzəm/ | альбинизм |
| haemoglobin/ˌhiːməˈɡləʊbɪn/ | гемоглобин |
| sickle cell anaemia/ˈsɪkl sel əˈniːmɪə/ | серповидноклеточная анемия |
| haemophilia/ˌhiːməˈfɪlɪə/ | гемофилия |
| Huntington's disease/ˈhʌntɪŋtnz dɪˈziːz/ | болезнь Хантингтона |
| gibberellin/ˌdʒɪbəˈrelɪn/ | гибереллин |
| elongation/iːˌlɒnˈɡeɪʃn/ | удлинение |
| structural gene/ˈstrʌktʃərəl dʒiːn/ | структурный ген |
| regulatory gene/ˌreɡjʊˈleɪtəri dʒiːn/ | регуляторный ген |
| inducible enzyme/ɪnˈdjuːsɪbl ˈenzaɪm/ | индуцибельный фермент |
| repressible enzyme/rɪˈpresɪbl ˈenzaɪm/ | репрессируемый фермент |
| prokaryote/ˈprɒkərɪəʊt/ | Прокариоты |
16.1
Критерий хи-квадрат
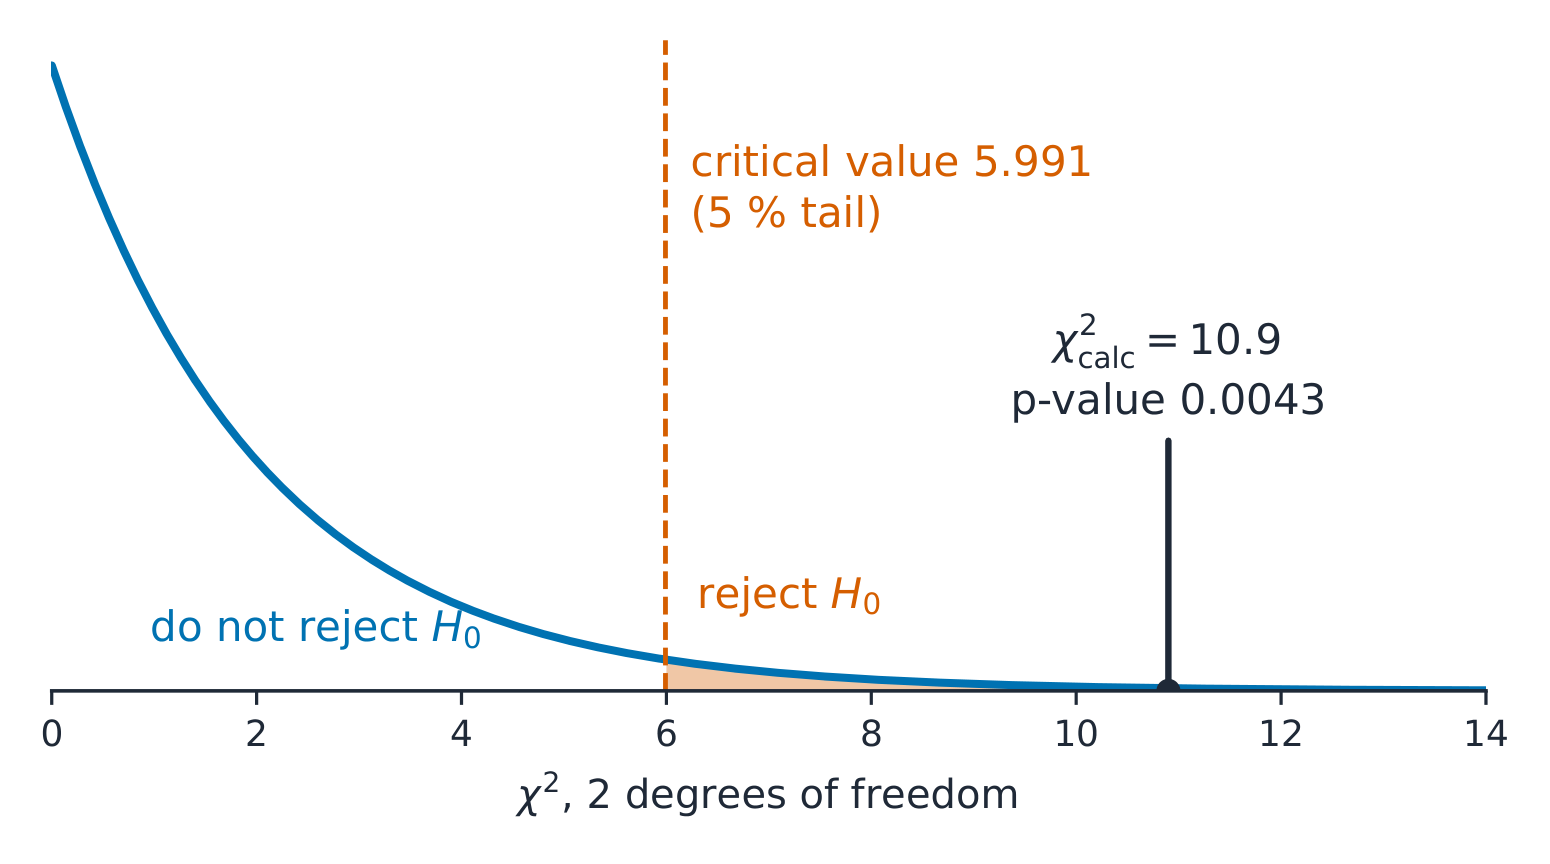
Критерий хи-квадрат сравнивает результаты, которые вы фактически подсчитали (числа наблюдаемых значений, $O$), с результатами, которые вы ожидали из генетической диаграммы (числа ожидаемых значений, $E$). Он показывает, является ли разница достаточно малой, чтобы быть случайной, или достаточно большой, чтобы означать присутствие другого фактора.
Для каждой группы суммируют квадрат разности между наблюдаемым и ожидаемым, деленный на ожидаемое:
$$\chi^2 = \sum \frac{(O - E)^2}{E}$$
Затем сравните это значение $\chi^2$ с критическим значением из таблицы. Строка, которую вы используете, определяется по числу степеней свободы (количество групп минус 1). Если $\chi^2$ меньше критического значения, разница несущественна — результаты соответствуют ожидаемому соотношению, и любое расхождение объясняется случайностью. Если $\chi^2$ больше критического значения, разница существенна, значит, в игру вступает какой-то другой фактор.
Разбор примера. При скрещивании $\text{Tt} \times \text{Tt}$ получается $160$ потомков: $114$ высоких и $46$ низких. Проверьте, соответствует ли это ожидаемому соотношению $3:1$.
Ожидаемые числа составляют $\tfrac{3}{4} \times 160 = 120$ высоких и $\tfrac{1}{4} \times 160 = 40$ низких. Затем:
$$\chi^2 = \frac{(114 - 120)^2}{120} + \frac{(46 - 40)^2}{40} = \frac{36}{120} + \frac{36}{40} = 0.30 + 0.90 = 1.20.$$
Есть $2$ групп, поэтому число степеней свободы $= 2 - 1 = 1$. Критическое значение при $p = 0.05$ равно $3.84$. Поскольку $1.20 < 3.84$, разница несущественна: результаты соответствуют соотношению $3:1$, а небольшое расхождение вызвано случайностью.
Разобранный пример (дигибридное скрещивание). Ожидается, что дигибридное скрещивание даст соотношение 9:3:3:1. Среди 320 потомков получены следующие числа: 196, 52, 58 и 14. Хорошо ли результат соответствует ожиданию?
| Класс 1 | Класс 2 | Класс 3 | Класс 4 | |
|---|---|---|---|---|
| $O$ | 196 | 52 | 58 | 14 |
| $E$ | $\frac{9}{16} \times 320 = 180$ | 60 | 60 | 20 |
| $(O - E)^2/E$ | 1.42 | 1.07 | 0.07 | 1.80 |
$\chi^2 = 1.42 + 1.07 + 0.07 + 1.80 = 4.36$. Имеется 4 классов, следовательно, число степеней свободы равно 3; критическое значение при $p = 0.05$ равно 7.82. Поскольку $4.36 < 7.82$, различие незначимо: результаты соответствуют соотношению 9:3:3:1, поэтому гены, вероятно, наследуются независимо. Если бы $\chi^2$ было больше 7.82, различие было бы значимым, что указывало бы на сцепление генов или действие эпистаза.
Исследовать
Проверьте генетическое соотношение с помощью хи-квадрат
Это пример решения на странице. Скрещивание даёт $\chi^2 = 1.20$ со $1$ степенью свободы, а виджет показывает критическое значение $3.84$ — установите статистику на $1.20$, и она окажется далеко за пределами заштрихованной области, поэтому результаты соответствуют $3:1$ соотношению. Перетащите её за $3.84$, чтобы увидеть, как выглядело бы значимое отклонение.
16.2
От генов к белкам и фенотипу
Программа
- объяснять термины: ген, локус, аллель, доминантный, рецессивный, кодоминантный, сцепление, пробное скрещивание, F1, F2, фенотип, генотип, гомозиготный и гетерозиготный
- интерпретировать и составлять генетические диаграммы, включая таблицы Пеннета, для объяснения и прогнозирования результатов моногибридного и дигибридного скрещиваний, включающих доминирование, кодоминирование, множественные аллели и половую наследственность
- интерпретировать и составлять генетические диаграммы, включая таблицы Пеннета, для объяснения и прогнозирования результатов дигибридных скрещиваний, включающих аутосомное сцепление и эпистаз (знание ожидаемых соотношений для различных типов эпистаза не требуется)
- интерпретировать и составлять генетические диаграммы, включая таблицы Пеннета, для объяснения и прогнозирования результатов пробных скрещиваний
- использовать критерий хи-квадрат для проверки значимости различий между наблюдаемыми и ожидаемыми результатами (формула критерия хи-квадрат будет предоставлена, как показано в Математических требованиях)
- объяснять связь между генами, белками и фенотипом в отношении: • гена TYR, тирозиназы и альбинизма • гена HBB, гемоглобина и серповидноклеточной анемии • гена F8, фактора VIII и гемофилии • гена HTT, хунтингтина и болезни Гuntingтона
- объяснять роль гибереллина в удлинении стебля, включая роль доминантного аллеля Le, кодирующего функциональный фермент в пути синтеза гибереллина, и рецессивного аллеля le, кодирующего нефункциональный фермент
Источник: Программа Cambridge International
Ген кодирует белок, который влияет на фенотип. Если ген дефектен, белок тоже дефектен, и фенотип меняется:
| Ген | Белок | Влияние дефектного аллеля |
|---|---|---|
| TYR | фермент тирозиназа | альбинизм (пигмент не вырабатывается) |
| HBB | гемоглобин | серповидноклеточная анемия |
| F8 | фактор VIII (участвует в свертывании крови) | гемофилия |
| HTT | хантингтин | болезнь Хантингтона |
Гиббереллин и высота стебля
У горошка доминантный аллель Le кодирует работающий фермент, синтезирующий гиббереллин, благодаря чему растение растет высоким за счет удлинения стебля. Рецессивный аллель le кодирует нерабочий фермент, поэтому гиббереллина вырабатывается мало, и растение остается низким.
Исследовать
От гена к фенотипу
Проходите по шагам. Ген производит белок, выполняющий функцию — так поврежденный аллель производит поврежденный белок и измененную черту.
16.3
Регуляция генов
Программа
- описывать различия между структурными генами и регуляторными генами, а также различия между репрессируемыми ферментами и индуцируемыми ферментами
- объяснять генетический контроль синтеза белка у прокариот с использованием lac-оперона (знание роли цАМФ не требуется)
- указывать, что транскрипционные факторы — это белки, связывающиеся с ДНК и участвующие в контроле экспрессии генов у эукариот путем снижения или повышения скорости транскрипции
- объяснять, как гибереллин активирует гены, вызывая разрушение белков-репрессоров DELLA, которые обычно ингибируют факторы, способствующие транскрипции
Источник: Программа Cambridge International
Не все гены активны постоянно. Клетки контролируют, какие белки они синтезируют.
- структурные гены кодируют полезные белки, такие как ферменты; регуляторные гены управляют тем, будут ли другие гены активированы.
- индуцируемый фермент синтезируется только тогда, когда он нужен; репрессируемый фермент обычно синтезируется, но может быть выключен.
Лактозный оперон
У прокариота, например у бактерии, группа генов под названием лактозный оперон регулирует переваривание лактозы:
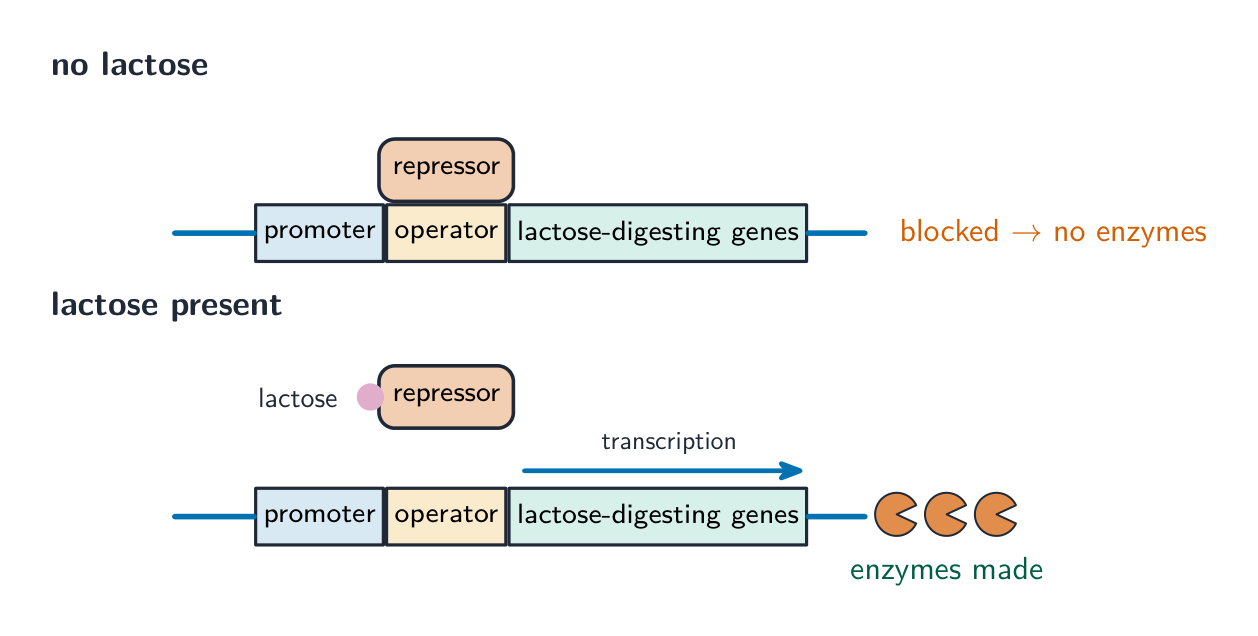
- когда нет лактозы, репрессор связывается с оператором (короткой управляющей последовательностью внутри оперона) и блокирует транскрипцию, поэтому ферменты для переваривания лактозы не образуются.
- когда лактоза присутствует, она связывается с репрессором и отрывает его. Транскрипция теперь возможна, и ферменты синтезируются. Следовательно, эти ферменты являются индуцируемыми.
Подробнее. Оперон — это участок ДНК, содержащий промотор (место связывания РНК-полимеразы), оператор и три структурных гена, которые транскрибируются вместе с образованием одной мРНК:
- lacZ кодирует β-галактозидазу, которая гидролизует лактозу до глюкозы и галактозы;
- lacY кодирует лактозную пермеазу — белок-переносчик, который доставляет лактозу в клетку;
- lacA кодирует трансацетилазу.
Отдельный регуляторный ген lacI, расположенный вне оперона, кодирует белок-репрессор. У репрессора два участка связывания: один подходит к оператору, а другой — к лактозе. Когда лактоза связывается с репрессором, он меняет форму и больше не может связаться с оператором, поэтому РНК-полимераза может перемещаться вдоль структурных генов. Таким образом, бактерия синтезирует ферменты только тогда, когда есть лактоза, которую можно использовать, и не тратит энергию и аминокислоты на их синтез в остальное время. Когда вся лактоза израсходована, репрессор снова связывается с оператором.
Мутация в операторе, препятствующая связыванию репрессора, или мутация в lacI, приводящая к образованию репрессора, который не может связаться с оператором, вызывает постоянный синтез ферментов как в присутствии лактозы, так и без неё.
Регуляция у эукариот
У эукариот факторы транскрипции — это белки, которые связываются с ДНК и регулируют экспрессию генов, увеличивая или уменьшая скорость транскрипции.
Гиббереллин активирует гены таким образом: он вызывает разрушение репрессоров типа DELLA. Эти белки DELLA обычно блокируют факторы, запускающие транскрипцию, поэтому их удаление позволяет экспрессии этих генов происходить.
Фактор транскрипции действует, связываясь с областью промотора гена. Одни факторы помогают РНК-полимеразе связаться с ним, включая ген; другие блокируют её. Гормоны часто действуют через факторы транскрипции: стероидный гормон, например эстроген, проходит через клеточную мембрану и связывается с белком-рецептором в цитоплазме, а комплекс гормона с рецептором входит в ядро и действует как фактор транскрипции. Благодаря этому разные типы клеток могут экспрессировать разные наборы генов, хотя их ДНК одинакова.
Типичные ошибки.
- Утверждение, что число хромосом уменьшается в мейозе II. Оно уменьшается в мейозе I, когда разделяются гомологичные пары; во втором делении разделяются сестринские хроматиды.
- Путаница между гомологичными хромосомами и сестринскими хроматидами. Гомологичные хромосомы происходят от разных родителей и могут нести разные аллели; сестринские хроматиды — идентичные копии, соединённые у центромера.
- Утверждение, что кроссинговер происходит между сестринскими хроматидами. Он происходит между хроматидами двух гомологичных хромосом в биваленте; обмен идентичными участками ничего бы не изменил.
- Приравнивание гена и аллеля как одного и того же. Ген отвечает за признак (цвет глаз); аллели — это его варианты (голубой, карий).
- В тесте хи-квадрат использование процентов или соотношений вместо чисел потомков, либо сравнение со 3.84 при наличии более одной степени свободы.
Исследовать
Лак-оперон
Проходите по переключателю. При отсутствии лактозы гены заблокированы; лактоза снимает репрессор и включает их.
Словарь
Тренировать
| English | Русский |
|---|---|
| lac operon/læk ˈɒpərən/ | лактозный оперон |
| repressor/rɪˈpresə/ | репрессор |
| transcription/trænˈskrɪpʃn/ | транскрипция |
| transcription factor/trænˈskrɪpʃn ˈfæktə/ | транскрипционный фактор |
| gene expression/dʒiːn ekˈspreʃn/ | экспрессия гена |
16.3
Советы для экзамена
- Полностью опишите схему скрещивания: родительские генотипы → гаметы (в кружках) → таблица Пеннета → соотношение потомства и фенотипы.
- Используйте тест хи-квадрат для сравнения наблюдаемых и ожидаемых значений; число степеней свободы $=$ количество классов $- 1$, сравните со $3.84$ при $p = 0.05$.
- Распознавайте кодоминирование, множественные аллели, половую связь, эпистаз и сцепление — каждое из них изменяет ожидаемое соотношение.
- Мейоз создает разнообразие благодаря кроссинговеру и независимому расхождению хромосом — назовите оба механизма.
- Записывайте кодоминантные и сцепленные с полом аллели с верхними индексами ($\text{C}^\text{R}\text{C}^\text{W}$, $\text{X}^\text{H}\text{X}^\text{h}$) и показывайте Y-хромосому без аллеля.
- Выучите ожидаемые соотношения: 3:1, 1:2:1 (кодоминирование), 1:1 (анализирующее скрещивание), 9:3:3:1 и 1:1:1:1 (дигибридное скрещивание), 9:3:4 (эпистаз).
- Большое число особей родительских типов и малое число рекомбинантов при дигибридном анализирующем скрещивании означает, что гены сцеплены.
- Лактозный оперон: регуляторный ген → репрессор; лактоза связывается с репрессором, изменяя его форму, так что он отсоединяется от оператора.
Интерактивные уроки по этой теме
Пройдите его шаг за шагом с упражнениями мгновенной проверки.