- expliquer les sens des termes haploïde (n) et diploïde (2n)
- expliquer ce que signifient les paires homologues de chromosomes
- expliquer la nécessité d'une division réductionnelle lors de la méiose dans la production de gamètes
- décrire le comportement des chromosomes dans les cellules végétales et animales pendant la méiose et le comportement associé de l'enveloppe nucléaire, de la membrane plasmique et du fuseau (les noms des principales étapes de la méiose, mais pas les subdivisions de la prophase I, sont attendus : prophase I, métaphase I, anaphase I, télophase I, prophase II, métaphase II, anaphase II et télophase II)
- interpréter des photomicrographies et des schémas de cellules à différents stades de la méiose et identifier les principales étapes de la méiose
- expliquer que le crossing-over et l'orientation aléatoire (assortiment indépendant) des paires de chromosomes homologues et des chromatides sœurs pendant la méiose produisent des gamètes génétiquement différents
- expliquer que la fusion aléatoire des gamètes lors de la fécondation produit des individus génétiquement différents
Héritage
Biologie A-Level · Sujet 16
 9:35
Génétique
Vous avez vingt-trois paires de chromosomes. Lorsqu'un gamète est formé, chaque paire s'aligne indépendamment — dans n'importe quel sens — de sorte que le nombre de gamètes différents que vous…
Narration en anglais · sous-titres en anglais et en 中文 au choix
16.1
Méiose et création de la variabilité génétique
Programme
Source : Programme Cambridge International
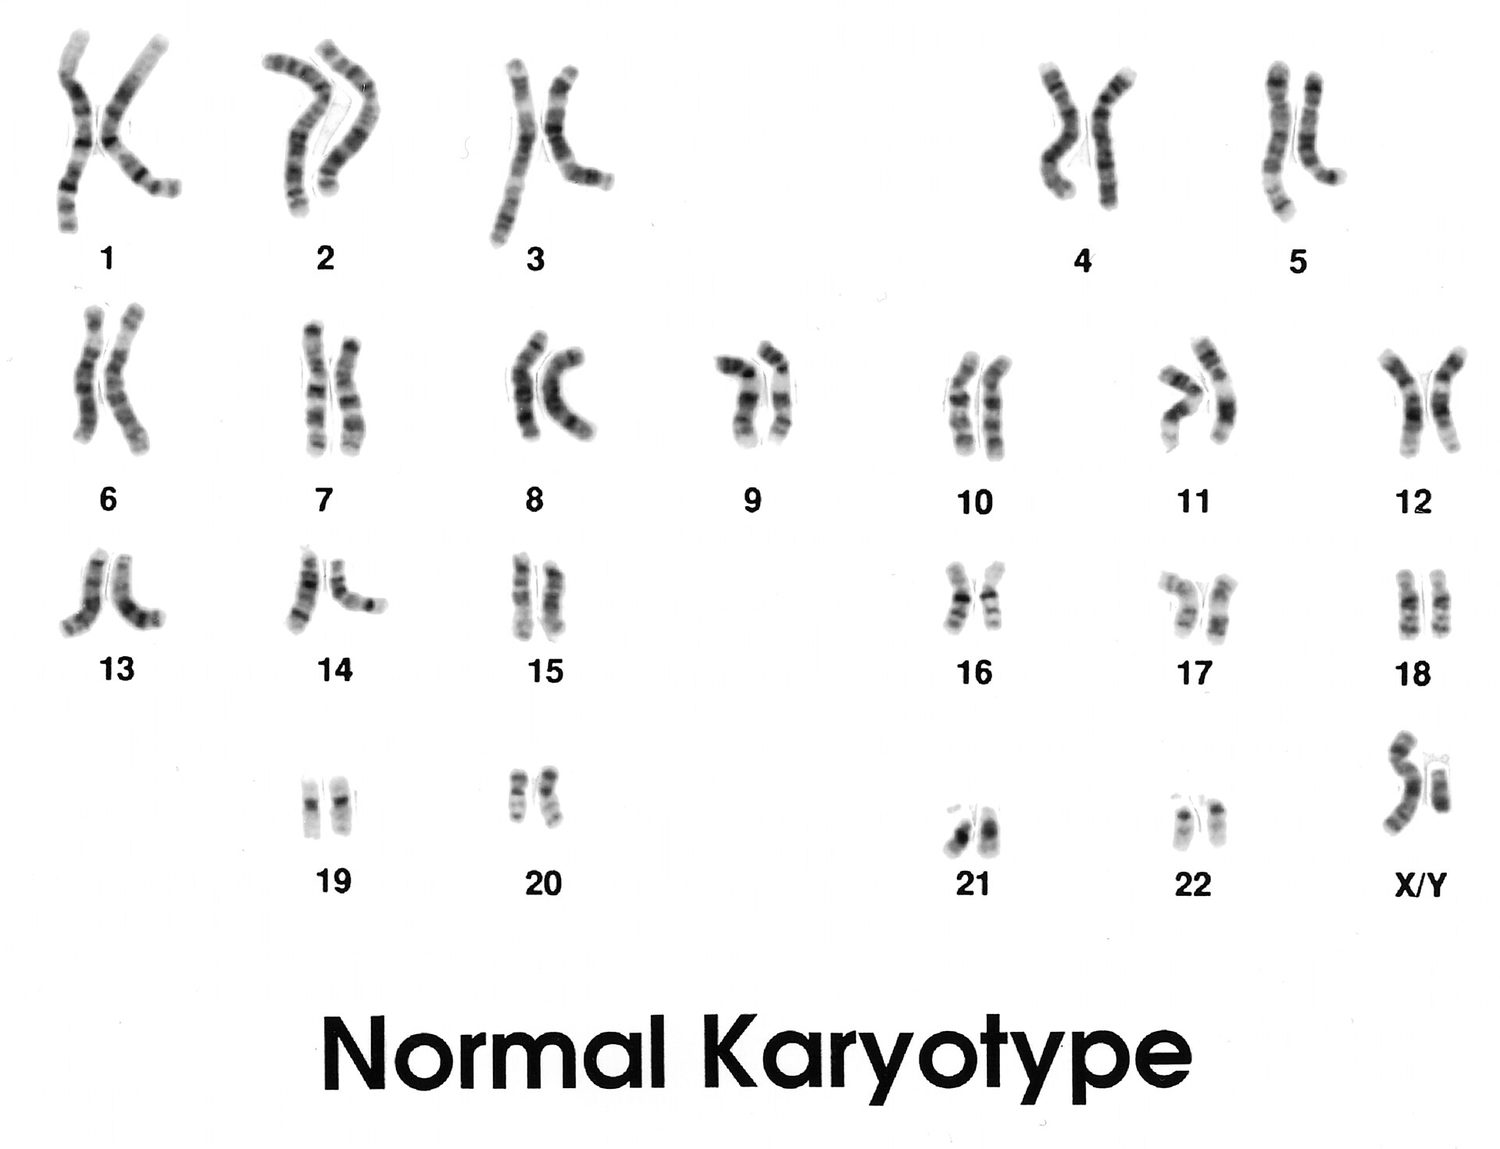
Une cellule diploïde (2n) possède deux ensembles complets de chromosomes — un ensemble hérité de chaque parent. Une cellule haploïde (n) n'en possède qu'un seul.
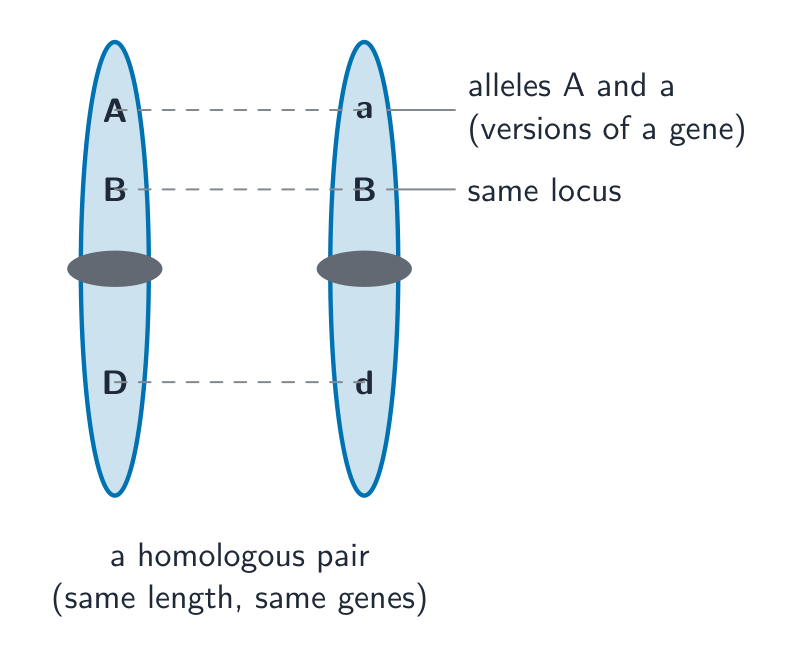
Les chromosomes existent par paires de chromosomes homologues : les deux chromosomes d'une paire ont la même longueur et portent les mêmes gènes (bien qu'ils puissent porter des allèles différents).
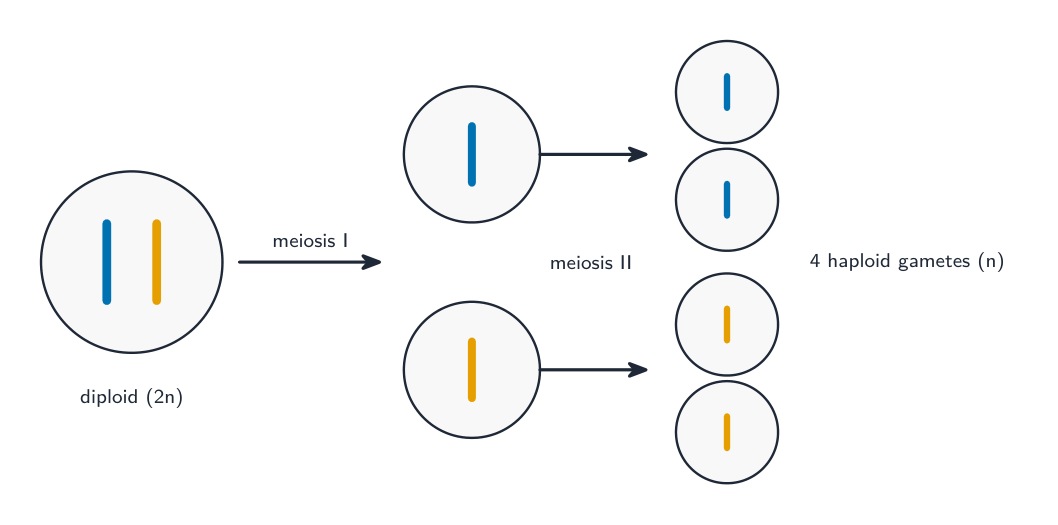
Les gamètes (cellules sexuelles) doivent être haploïdes. S'ils étaient diploïdes, le nombre de chromosomes doublerait à chaque génération. Ils sont donc produits par une division cellulaire spéciale, la méiose, qui divise le nombre de chromosomes par deux.
La méiose comporte deux divisions successives, donnant naissance à huit phases nommées : prophase I, métaphase I, anaphase I et télophase I, puis prophase II, métaphase II, anaphase II et télophase II. Comme en mitose, l'enveloppe nucléaire se désagrège, un fuseau s'organise, et les chromosomes sont déplacés par celui-ci.
Les étapes de la méiose, pas à pas
Avant le début de la méiose, chaque chromosome est dupliqué lors de l'interphase ; il est alors constitué de deux chromatides sœurs identiques reliées au niveau du centromère.
| Étape | Ce qui se produit pour les chromosomes |
|---|---|
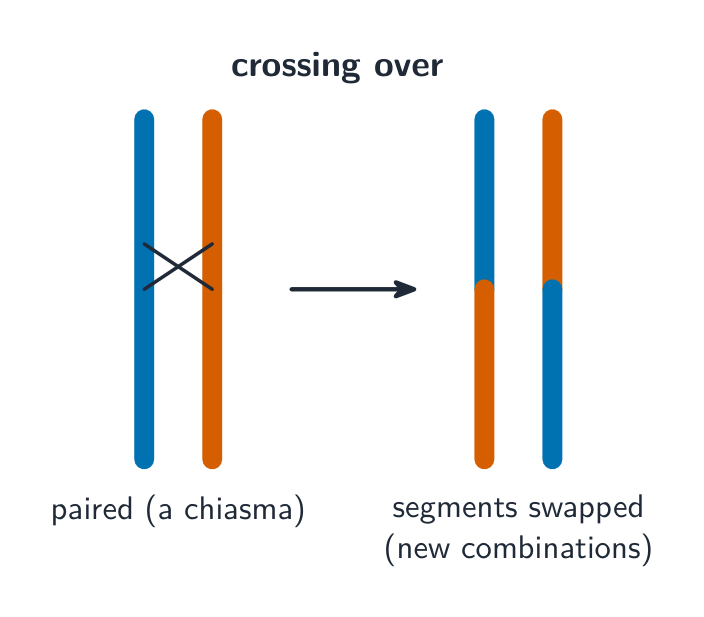
| prophase I | les chromosomes se condensent ; chaque paire homologue s'apparie pour former un bivalent ; un crossing-over a lieu aux points appelés chiasmata (un chiasma est un point unique) ; l'enveloppe nucléaire se désagrège et le fuseau se forme |
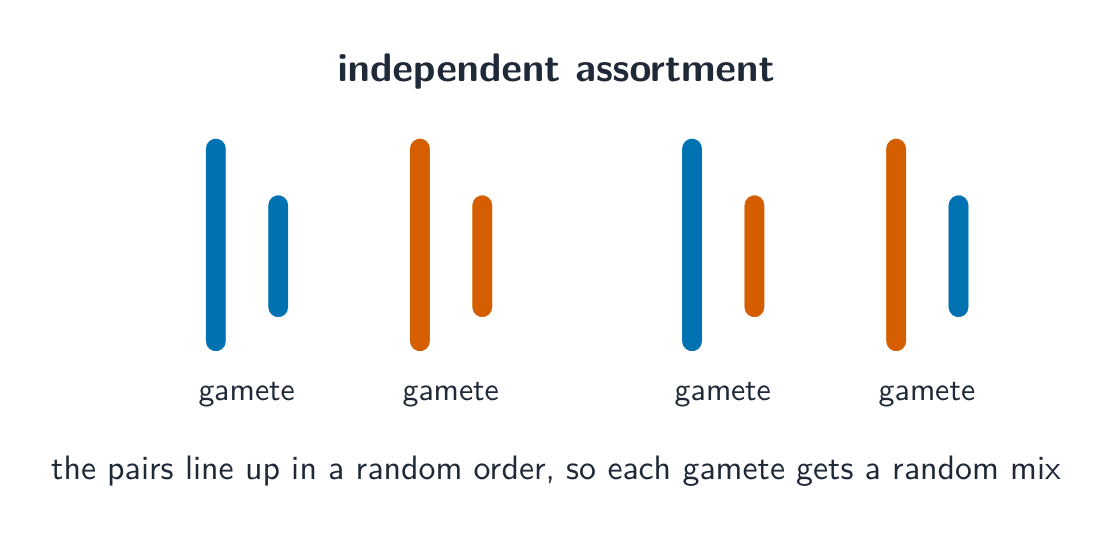
| métaphase I | les bivalents s'alignent sur l'équateur du fuseau ; chaque paire s'oriente vers les pôles de manière aléatoire (assortiment indépendant) |
| anaphase I | les deux chromosomes de chaque paire sont tirés vers les pôles opposés ; les centromères ne se divisent pas, donc chaque chromosome conserve encore ses deux chromatides |
| télophase I | deux noyaux se forment, chacun étant haploïde (un chromosome de chaque paire) |
| prophase II | les chromosomes se condensent à nouveau et de nouveaux fuseaux se forment |
| métaphase II | les chromosomes individuels s'alignent sur l'équateur |
| anaphase II | les centromères se divisent et les chromatides sœurs sont tirées vers les pôles opposés |
| télophase II | quatre noyaux haploïdes se forment ; le cytoplasme se divise pour donner quatre cellules |
Ainsi, la méiose I sépare les chromosomes homologues (c'est là que le nombre est divisé par deux), et la méiose II sépare les chromatides, comme en mitose.
Exemple résolu. Une cellule a un nombre diploïde de 8 ($2n = 8$). Combien y a-t-il de chromosomes et de chromatides dans chaque cellule à (a) la métaphase I, (b) la métaphase II, (c) la fin de la télophase II ?
(a) Métaphase I : rien ne s'est encore séparé, donc il y a 8 chromosomes, chacun composé de deux chromatides : 16 chromatides. (b) Métaphase II : la méiose I a envoyé un chromosome de chaque paire vers chaque cellule, donc 4 chromosomes, toujours avec deux chromatides chacun : 8 chromatides. (c) Après la télophase II, les chromatides se sont séparées, donc chaque cellule possède 4 chromosomes, chacun ayant une seule chromatide.
La méiose rend les gamètes génétiquement différents les uns des autres de deux manières :
- crossing over — échange de segments correspondants entre chromosomes homologues, mélangeant les allèles.
- assortiment indépendant — les paires s'alignent aléatoirement, de sorte que chaque gamète reçoit un mélange aléatoire des chromosomes parentaux.
Ensuite, lors de la fécondation, n'importe quel gamète peut fusionner avec n'importe lequel autre. Cette fécondation aléatoire rend chaque nouvel individu génétiquement distinct.
Combien de combinaisons ? Avec $n$ paires de chromosomes homologues, l’assortiment indépendant peut à lui seul produire $2^n$ combinaisons différentes dans les gamètes. Un être humain possède 23 paires : une personne peut donc produire $2^{23}$ types de gamètes (environ 8 millions), avant même que les enjambements n’en ajoutent davantage. Deux parents peuvent alors produire $2^{23} \times 2^{23}$ combinaisons différentes de chromosomes chez leurs enfants (environ 70 millions de millions).
Explorer
Méiose
Passez-le en revue. Deux divisions divisent le nombre de chromosomes par deux et mélangent les allèles, donnant quatre gamètes uniques.
Vocabulaire
Entrainer
| English | Français |
|---|---|
| diploid/ˈdɪplɔɪd/ | diploid : diploïde |
| chromosome/ˈkrəʊməsəʊm/ | chromosome |
| haploid/ˈhæplɔɪd/ | haploid : haploïde |
| gamete/ˈɡæmiːt/ | gamete : gamète |
| homologous chromosomes/həˈmɒləɡəs ˈkrəʊməsəʊmz/ | chromosomes homologues |
| gene/dʒiːn/ | gène |
| meiosis/meɪˈəʊsɪs/ | meiosis : méiose |
| nuclear envelope/ˈnjuːklɪə ˈenvələʊp/ | enveloppe nucléaire |
| spindle/ˈspɪndl/ | fuseau |
| sister chromatids/ˈsɪstə ˈkrəʊmətɪdz/ | chromatides sœurs |
| centromere/ˈsentrəʊmə/ | centromère |
| bivalent | bivalent |
| chiasmata | chiasmes |
| equator/ɪˈkweɪtə/ | équateur |
| crossing over/ˈkrɒsɪŋ ˈəʊvə/ | crossing over : crossing-over |
| independent assortment/ˌɪndɪˈpendənt əˈsɔːtmənt/ | independent assortment : assortiment indépendant |
| fertilisation/ˌfɜːtɪlaɪˈzeɪʃn/ | fertilisation : fécondation |
| protein/ˈprəʊtiːn/ | protéine |
16.1
Langage de la génétique
Vous devez connaître ces termes exactement :
- un gène est un segment d'ADN qui code pour une protéine. Sa position sur un chromosome est son locus.
- un allèle est une version d'un gène.
- un allèle dominant s'exprime même lorsqu'une seule copie est présente ; un allèle récessif ne s'exprime que lorsque deux copies sont présentes.
- des allèles codominants s'expriment tous les deux simultanément.
- le génotype désigne l'ensemble des allèles d'un organisme ; le phénotype regroupe les caractéristiques observables.
- homozygote signifie que les deux allèles sont identiques ; hétérozygote signifie qu'ils sont différents.
- un test-cross consiste à croiser un organisme avec un homozygote récessif pour déterminer son génotype inconnu.
Explorer
Laboratoire de vocabulaire génétique
Reliez chaque mot de génétique à la véritable caractéristique qu'il nomme.
Vocabulaire
Entrainer
| English | Français |
|---|---|
| locus/ˈləʊkəs/ | locus : locus |
| allele/əˈliːl/ | allele : allèle |
| dominant/ˈdɒmɪnənt/ | dominant : dominant |
| recessive/rɪˈsesɪv/ | recessive : récessif |
| codominant/ˈkəʊdəmɪnənt/ | codominant : codominant |
| genotype/ˈdʒenətaɪp/ | genotype : génotype |
| phenotype/ˈfenətaɪp/ | phenotype : phénotype |
| homozygous/ˌhɒməˈzɪɡəs/ | homozygous : homozygote |
| heterozygous/ˌhetrəˈzɪɡəs/ | heterozygous : hétérozygote |
| test cross/test krɒs/ | test cross : croisement-test |
16.1
Diagrammes génétiques et croisements
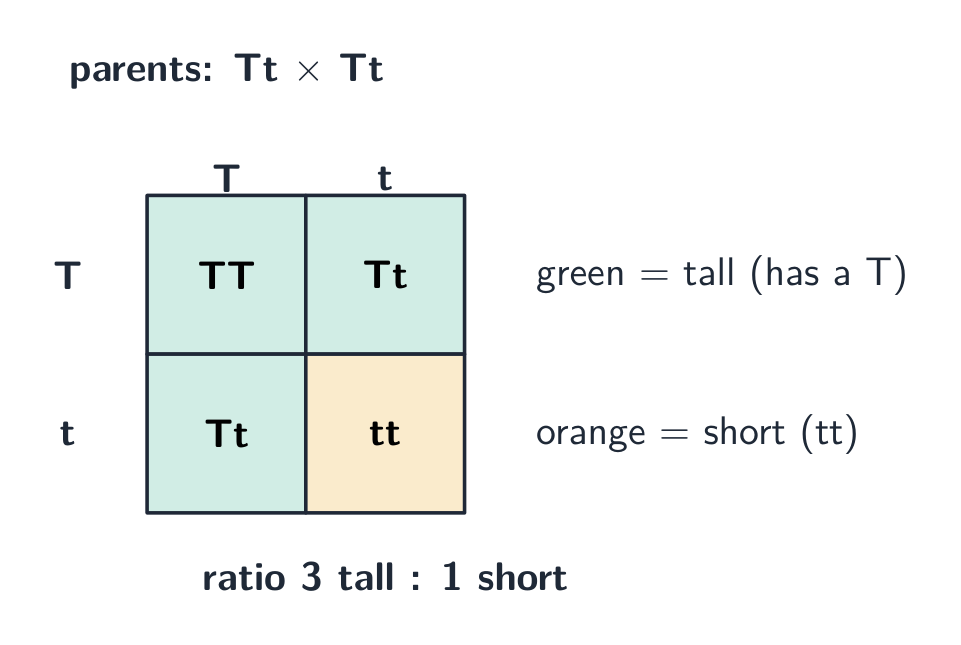
On représente un croisement à l'aide d'un schéma génétique, souvent via une case de Punnett — une grille illustrant toutes les combinaisons possibles des gamètes.
- un monohybride suit un seul gène ; un dihybride suit deux gènes simultanément.
- certains gènes possèdent des allèles multiples (plus de deux versions dans la population), comme ceux déterminant les groupes sanguins humains.
- dans le ligament sexuel, le gène se trouve sur le chromosome X, ce qui produit des résultats différents chez les mâles et les femelles.
- dans la ligature, les gènes situés sur le même autosome (un chromosome non sexuel) ont tendance à être hérités ensemble.
- dans l'épistasie, un gène influence l'expression d'un autre gène.
Croisements corrigés
Codominance. Chez une plante, les allèles $\text{C}^\text{R}$ (rouge) et $\text{C}^\text{W}$ (blanc) sont codominants : l’hétérozygote $\text{C}^\text{R}\text{C}^\text{W}$ est rose. Croisez deux plantes roses. Gamètes : $\text{C}^\text{R}$ ou $\text{C}^\text{W}$ pour chaque parent. Descendance : $\text{C}^\text{R}\text{C}^\text{R}$ (rouge) : $\text{C}^\text{R}\text{C}^\text{W}$ (rose) : $\text{C}^\text{W}\text{C}^\text{W}$ (blanc) $= 1:2:1$. En cas de codominance, chaque génotype possède son propre phénotype : le rapport n’est donc pas de 3:1. Les allèles codominants s’écrivent avec la lettre du gène et des exposants, jamais avec des majuscules et des minuscules.
Allèles multiples. Le gène du groupe sanguin ABO possède trois allèles : $\text{I}^\text{A}$ et $\text{I}^\text{B}$ sont codominants, et $\text{I}^\text{o}$ est récessif par rapport aux deux. Un homme du groupe A ($\text{I}^\text{A}\text{I}^\text{o}$) et une femme du groupe B ($\text{I}^\text{B}\text{I}^\text{o}$) peuvent avoir des enfants appartenant aux quatre groupes : $\text{I}^\text{A}\text{I}^\text{B}$ (AB), $\text{I}^\text{A}\text{I}^\text{o}$ (A), $\text{I}^\text{B}\text{I}^\text{o}$ (B) et $\text{I}^\text{o}\text{I}^\text{o}$ (O), chacun avec une probabilité de $1/4$.
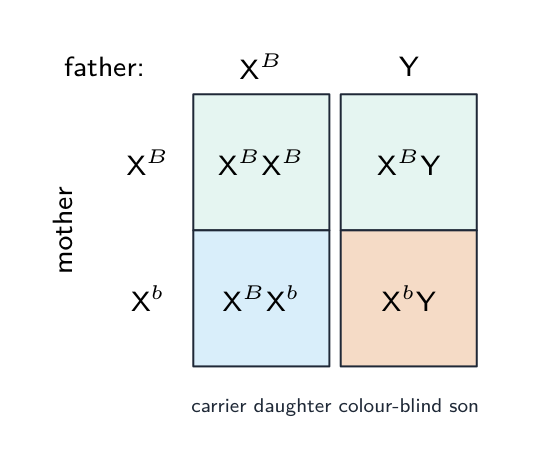
Liaison au sexe. L’hémophilie est causée par un allèle récessif $\text{X}^\text{h}$ situé sur le chromosome X ; le chromosome Y ne porte aucune copie du gène. Une femme porteuse ($\text{X}^\text{H}\text{X}^\text{h}$) et un homme non hémophile ($\text{X}^\text{H}\text{Y}$) :
| Gamètes | $\text{X}^\text{H}$ (père) | $\text{Y}$ (père) |
|---|---|---|
| $\text{X}^\text{H}$ (mère) | $\text{X}^\text{H}\text{X}^\text{H}$ fille, non atteinte | $\text{X}^\text{H}\text{Y}$ garçon, non atteint |
| $\text{X}^\text{h}$ (mère) | $\text{X}^\text{H}\text{X}^\text{h}$ fille, porteuse | $\text{X}^\text{h}\text{Y}$ garçon, hémophile |
Chaque fils a une probabilité de $1/2$ d’être hémophile ; aucune fille ne l’est, mais la moitié sont porteuses. Les hommes n’ont besoin que d’un seul allèle récessif pour présenter la maladie, car ils ne possèdent qu’un chromosome X ; les maladies récessives liées au sexe sont donc beaucoup plus fréquentes chez eux. Un père transmet son chromosome X à toutes ses filles et à aucun de ses fils.
Croisement dihybride. Chez le pois, le caractère graine ronde (R) domine le caractère ridé (r), et le caractère jaune (Y) domine le caractère vert (y) ; les deux gènes se trouvent sur des chromosomes différents. Croisez deux plantes hétérozygotes pour les deux gènes, RrYy × RrYy. Chaque parent produit quatre types de gamètes en proportions égales, car les gènes s’assortissent indépendamment : RY, Ry, rY et ry. Un échiquier de Punnett de 4 × 4 donne 16 combinaisons :
| Phénotype | Génotypes | Nombre parmi les 16 |
|---|---|---|
| rond, jaune | R_Y_ | 9 |
| rond, vert | R_yy | 3 |
| ridé, jaune | rrY_ | 3 |
| ridé, vert | rryy | 1 |
Le rapport est donc de 9:3:3:1. Un croisement-test dihybride (RrYy × rryy) donne 1:1:1:1.
Liaison autosomique. Si les deux gènes sont proches sur le même chromosome, ils ne s’assortissent pas indépendamment : les allèles d’un même chromosome tendent à se retrouver dans le même gamète. Un croisement qui donnerait 9:3:3:1 produit alors surtout les deux combinaisons parentales et seulement quelques descendants recombinés — ceux qui résultent d’un enjambement entre les deux loci. Un croisement-test donnant bien plus de 25 % de chaque type parental et beaucoup moins de nouvelles combinaisons montre que les gènes sont liés.
Épistasie. Chez la souris, le gène A détermine si un pigment est produit : A (pigment produit) domine a (absence de pigment, blanc). Le gène B détermine la couleur du pigment : B (agouti, pelage gris-brun) domine b (noir). Les souris aa sont blanches quels que soient leurs allèles du gène B : le gène A est épistatique au gène B. AaBb × AaBb donne 9 A_B_ (agouti), 3 A_bb (noir) et 4 aa (blanc, quels que soient les allèles B), soit un rapport de 9:3:4 au lieu de 9:3:3:1. D’autres formes d’épistasie donnent 9:7, 12:3:1 ou 15:1. Un rapport dihybride de 16 parts différent de 9:3:3:1 suggère une épistasie.
Explorer
Un croisement monohybrid
Définissez le génotype de chaque parent et lisez la descendance. Croiser deux hétérozygotes (Aa × Aa) donne le ratio classique 3 : 1.
Vocabulaire
Entrainer
| English | Français |
|---|---|
| Punnett square/ˈpʌnɪt skweə/ | carré de Punnett |
| monohybrid cross/ˈmɒnəʊhaɪbrɪd krɒs/ | hybridation monohybride |
| dihybrid cross/daɪˈhaɪbrɪd krɒs/ | hybridation dihybride |
| multiple alleles/ˈmʌltɪpl əˈliːlz/ | allèles multiples |
| sex linkage/seks ˈlɪŋkɪdʒ/ | ligue sexuelle |
| linkage/ˈlɪŋkɪdʒ/ | ligaison génétique |
| autosome/ˈɔːtəʊsəʊm/ | autosome |
| epistasis/ɪpɪˈstɑːsiz/ | épistasie |
| chi-squared test/kaɪ skweəd test/ | test du chi carré |
16.1
Le test du chi-carré
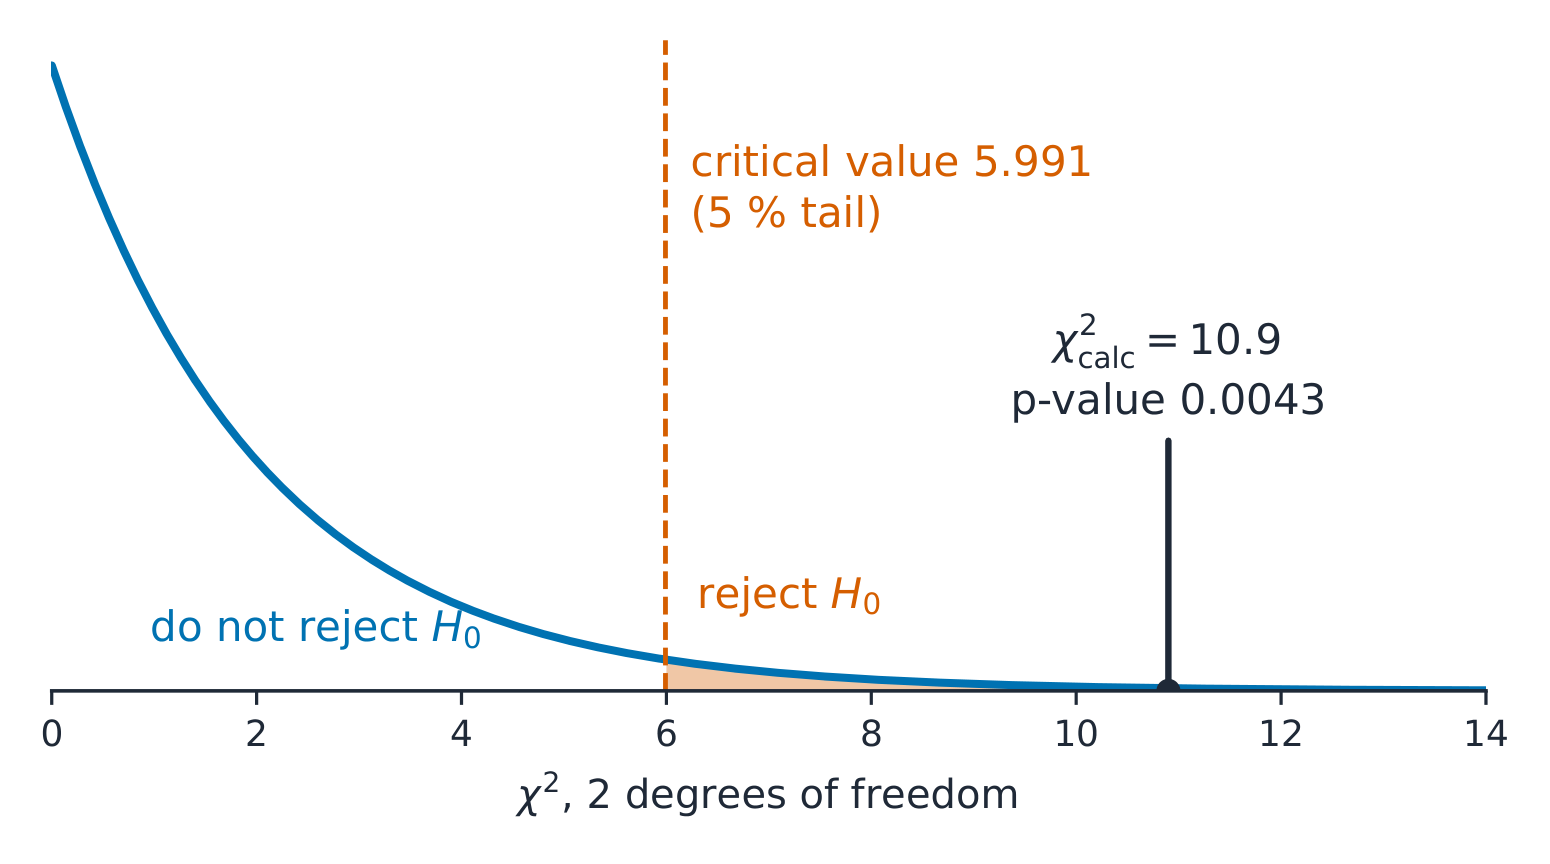
Le test du khi-deux compare les résultats que vous avez réellement comptés (les données observées, $O$) avec les résultats attendus d'après le diagramme génétique (les données attendues, $E$). Il indique si la différence est suffisamment faible pour être due au hasard, ou suffisamment grande pour indiquer qu'un autre facteur est en jeu.
Vous additionnez, pour chaque groupe, la différence au carré entre l'observé et l'attendu, divisée par l'attendu :
$$\chi^2 = \sum \frac{(O - E)^2}{E}$$
Ensuite, vous comparez cette valeur $\chi^2$ à une valeur critique extraite d'un tableau. La ligne utilisée est déterminée par les degrés de liberté (le nombre de groupes moins 1). Si $\chi^2$ est inférieur à la valeur critique, la différence n'est pas significative — les résultats correspondent au ratio attendu, et toute différence est simplement due au hasard. Si $\chi^2$ est supérieur à la valeur critique, la différence est significative, donc un autre facteur est impliqué.
Exemple résolu. Un croisement $\text{Tt} \times \text{Tt}$ donne $160$ descendants : $114$ grands et $46$ petits. Testez si cela correspond au rapport attendu $3:1$.
Les nombres attendus sont $\tfrac{3}{4} \times 160 = 120$ grands et $\tfrac{1}{4} \times 160 = 40$ nains. Ensuite :
$$\chi^2 = \frac{(114 - 120)^2}{120} + \frac{(46 - 40)^2}{40} = \frac{36}{120} + \frac{36}{40} = 0.30 + 0.90 = 1.20.$$
Il y a $2$ groupes, donc les degrés de liberté $= 2 - 1 = 1$. La valeur critique à $p = 0.05$ est $3.84$. Puisque $1.20 < 3.84$, la différence n'est pas significative : les résultats correspondent à un ratio de $3:1$, et la petite différence est due au hasard.
Exemple corrigé (croisement dihybride). Un croisement dihybride devrait donner 9:3:3:1. Parmi 320 descendants, les effectifs sont de 196, 52, 58 et 14. Le résultat correspond-il bien au rapport attendu ?
| Classe 1 | Classe 2 | Classe 3 | Classe 4 | |
|---|---|---|---|---|
| $O$ | 196 | 52 | 58 | 14 |
| $E$ | $\frac{9}{16} \times 320 = 180$ | 60 | 60 | 20 |
| $(O - E)^2/E$ | 1.42 | 1.07 | 0.07 | 1.80 |
$\chi^2 = 1.42 + 1.07 + 0.07 + 1.80 = 4.36$. Il y a 4 classes, donc 3 degrés de liberté ; la valeur critique à $p = 0.05$ est 7.82. Comme $4.36 < 7.82$, la différence n’est pas significative : les résultats correspondent à 9:3:3:1, donc les gènes s’assortissent probablement indépendamment. Si $\chi^2$ avait été supérieur à 7.82, la différence aurait été significative, ce qui suggérerait que les gènes sont liés ou qu’une épistasie intervient.
Explorer
Tester un ratio génétique avec le chi-deux
C'est l'exemple résolu sur la page. Le croisement donne $\chi^2 = 1.20$ avec $1$ degré de liberté, et le widget affiche la valeur critique $3.84$ — réglez la statistique à $1.20$ et elle tombe bien en deçà de la zone ombragée, donc les résultats s'ajustent au ratio $3:1$. Faites-le glisser au-delà de $3.84$ pour voir à quoi ressemblerait un écart significatif.
16.2
Des gènes aux protéines au phénotype
Programme
- expliquer les termes gène, locus, allèle, dominant, récessif, codominant, liage, croisement-test, F1, F2, phénotype, génotype, homozygote et hétérozygote
- interpréter et construire des diagrammes génétiques, y compris les carreaux de Punnett, pour expliquer et prédire les résultats de croisements monohybrides et dihybrides impliquant la dominance, la codominance, les allèles multiples et le liage sexuel
- interpréter et construire des diagrammes génétiques, y compris les carreaux de Punnett, pour expliquer et prédire les résultats de croisements dihybrides impliquant le liage autosomique et l'épigénèse (la connaissance des ratios attendus pour les différents types d'épigénèse n'est pas requise)
- interpréter et construire des diagrammes génétiques, y compris les carreaux de Punnett, pour expliquer et prédire les résultats de croisements tests
- utiliser le test du khi-deux pour tester la significativité des différences entre les résultats observés et attendus (la formule du test du khi-deux sera fournie, comme indiqué dans les Exigences mathématiques)
- expliquer la relation entre les gènes, les protéines et le phénotype concernant : • le gène TYR, la tyrosinase et l'albinisme • le gène HBB, l'hémoglobine et l'anémie falciforme • le gène F8, le facteur VIII et l'hémophilie • le gène HTT, l'huntingtine et la maladie de Huntington
- expliquer le rôle de la gibbérelline dans l'allongement de la tige, y compris le rôle de l'allèle dominant, Le, qui code pour une enzyme fonctionnelle dans la voie de synthèse de la gibbérelline, et de l'allèle récessif, le, qui code pour une enzyme non fonctionnelle
Source : Programme Cambridge International
Un gène code pour une protéine, et cette protéine affecte le phénotype. Si le gène est défectueux, la protéine est défectueuse, et le phénotype change :
| Gène | Protéine | Effet d'un allèle défectueux |
|---|---|---|
| TYR | l'enzyme tyrosinase | albinisme (aucun pigment produit) |
| HBB | hémoglobine | anémie falciforme |
| F8 | facteur VIII (contribue à la coagulation sanguine) | hémophilie |
| HTT | huntingtine | maladie de Huntington |
Gibbérelline et hauteur de tige
Chez les plants de pois, l'allèle dominant Le code pour une enzyme fonctionnelle produisant de la gibbérelline, ce qui permet au plant de grandir par allongement de la tige. L'allèle récessif le code pour une enzyme défectueuse ; peu de gibbérelline est alors produite et le plant reste nain.
Explorer
Du gène au phénotype
Passez-le en revue. Un gène produit une protéine qui remplit une fonction — donc un allèle défectueux produit une protéine défectueuse et une caractéristique modifiée.
Vocabulaire
Entrainer
| English | Français |
|---|---|
| enzyme/ˈenzaɪm/ | enzyme |
| albinism/ˈælbɪnɪzəm/ | albinisme |
| haemoglobin/ˌhiːməˈɡləʊbɪn/ | hémoglobine |
| sickle cell anaemia/ˈsɪkl sel əˈniːmɪə/ | anémie falciforme |
| haemophilia/ˌhiːməˈfɪlɪə/ | hémophilie |
| Huntington's disease/ˈhʌntɪŋtnz dɪˈziːz/ | Maladie de Huntington |
| gibberellin/ˌdʒɪbəˈrelɪn/ | gibbérelline |
| elongation/iːˌlɒnˈɡeɪʃn/ | allongement |
| structural gene/ˈstrʌktʃərəl dʒiːn/ | gène structural |
| regulatory gene/ˌreɡjʊˈleɪtəri dʒiːn/ | gène régulateur |
| inducible enzyme/ɪnˈdjuːsɪbl ˈenzaɪm/ | enzyme inductible |
| repressible enzyme/rɪˈpresɪbl ˈenzaɪm/ | Enzyme réprimable |
| prokaryote/ˈprɒkərɪəʊt/ | procaryote |
16.3
Contrôle génique
Programme
- décrire les différences entre les gènes structuraux et les gènes régulateurs, ainsi que les différences entre les enzymes répressibles et les enzymes inductibles
- expliquer le contrôle génétique de la production de protéines chez un procaryote en utilisant l'opéron lac (la connaissance du rôle de l'AMPc n'est pas requise)
- affirmer que les facteurs de transcription sont des protéines qui se lient à l'ADN et participent au contrôle de l'expression des gènes chez les eucaryotes en diminuant ou augmentant le taux de transcription
- expliquer comment la gibbérelline active les gènes en provoquant la dégradation des répresseurs de type protéine DELLA, qui inhibent normalement les facteurs favorisant la transcription
Source : Programme Cambridge International
Tous les gènes ne sont pas activés en permanence. Les cellules contrôlent quelles protéines elles produisent.
- Les gènes structuraux codent pour des protéines utiles telles que des enzymes ; les gènes régulateurs contrôlent l'activation ou non d'autres gènes.
- Une enzyme inductible n'est produite que lorsqu'elle est nécessaire ; une enzyme réprimable est normalement produite mais peut être désactivée.
L'opéron lac
Chez un procaryote tel qu'une bactérie, un groupe de gènes appelé opéron lac contrôle la digestion du lactose :
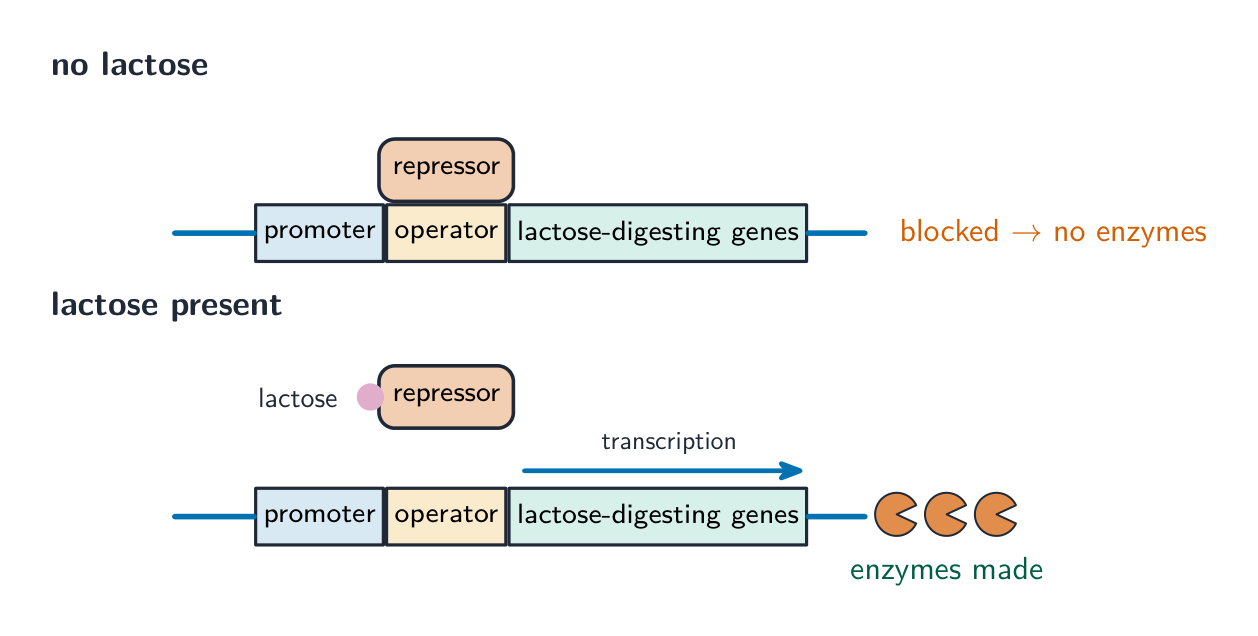
- En l'absence de lactose, une protéine répresseur se lie à l'opérateur (une courte séquence de contrôle au sein de l'opéron) et bloque la transcription, empêchant ainsi la production des enzymes digestives du lactose.
- lorsque le lactose est présent, il se lie au répresseur et l'en détache. La transcription peut maintenant avoir lieu, et les enzymes sont produites. Les enzymes sont donc inductibles.
Plus en détail. L’opéron est un segment d’ADN comprenant un promoteur (où se fixe l’ARN polymérase), l’opérateur et trois gènes structuraux transcrits ensemble en un seul ARNm :
- lacZ code la β-galactosidase, qui hydrolyse le lactose en glucose et en galactose ;
- lacY code la perméase du lactose, une protéine de transport qui fait entrer le lactose dans la cellule ;
- lacA code une transacétylase.
Un gène régulateur distinct, lacI, situé en dehors de l’opéron, code la protéine répresseur. Le répresseur possède deux sites de liaison : l’un correspond à l’opérateur et l’autre au lactose. Lorsque le lactose se lie au répresseur, celui-ci change de forme et ne peut plus se lier à l’opérateur ; l’ARN polymérase peut alors parcourir les gènes structuraux. La bactérie ne fabrique donc les enzymes que lorsque le lactose est présent et peut être utilisé ; elle ne gaspille pas d’énergie ni d’acides aminés à les fabriquer à d’autres moments. Lorsque tout le lactose a été utilisé, le répresseur se lie de nouveau à l’opérateur.
Une mutation de l’opérateur qui empêche la liaison du répresseur, ou une mutation de lacI qui produit un répresseur incapable de se lier à l’opérateur, entraîne la fabrication permanente des enzymes, avec ou sans lactose.
Contrôle chez les eucaryotes
Chez les eucaryotes, les facteurs de transcription sont des protéines qui se lient à l'ADN et contrôlent l'expression génique en augmentant ou en diminuant le taux de transcription.
La gibbérelline active les gènes de cette manière : elle provoque la dégradation des répresseurs protéiques DELLA. Ces protéines DELLA bloquent normalement les facteurs qui activent la transcription ; leur suppression permet donc l'expression de ces gènes.
Un facteur de transcription agit en se liant à la région promotrice d’un gène. Certains facilitent la liaison de l’ARN polymérase et activent ainsi le gène ; d’autres la bloquent. Les hormones agissent souvent par l’intermédiaire de facteurs de transcription : une hormone stéroïde comme l’œstrogène traverse la membrane plasmique et se lie à une protéine réceptrice dans le cytoplasme ; le complexe hormone–récepteur entre ensuite dans le noyau et agit comme facteur de transcription. C’est ainsi que deux types de cellules peuvent exprimer des ensembles de gènes différents tout en possédant le même ADN.
Erreurs fréquentes.
- Dire que le nombre de chromosomes diminue de moitié lors de la méiose II. Il diminue de moitié lors de la méiose I, lorsque les paires homologues se séparent ; la méiose II sépare les chromatides sœurs.
- Confondre les chromosomes homologues et les chromatides sœurs. Les chromosomes homologues proviennent de parents différents et peuvent porter des allèles différents ; les chromatides sœurs sont des copies identiques reliées par un centromère.
- Dire que le crossing-over se produit entre les chromatides sœurs. Il a lieu entre les chromatides des deux chromosomes homologues dans un bivalent ; l'échange de segments identiques ne changerait rien.
- Écrire un gène et un allèle comme étant la même chose. Le gène correspond à un caractère (couleur des yeux) ; les allèles en sont ses variantes (bleu, brun).
- Dans un test du khi-deux, utiliser des pourcentages ou des ratios au lieu des nombres de descendants, ou comparer avec 3.84 lorsqu'il y a plus d'un degré de liberté.
Explorer
opéron lac
Passez en revue le mécanisme de commutation. Sans lactose, les gènes sont bloqués ; le lactose détache le répresseur et active les gènes.
Vocabulaire
Entrainer
| English | Français |
|---|---|
| lac operon/læk ˈɒpərən/ | opéron lac |
| repressor/rɪˈpresə/ | répresseur |
| transcription/trænˈskrɪpʃn/ | transcription |
| transcription factor/trænˈskrɪpʃn ˈfæktə/ | facteur de transcription |
| gene expression/dʒiːn ekˈspreʃn/ | expression génique |
16.3
Conseils d'examen
- Établissez un croisement entièrement : génotypes parentaux → gamètes (dans des cercles) → échiquier de Punnett → ratio et phénotypes de la descendance.
- Utilisez le test du chi-carré pour comparer l'observé avec l'attendu ; degrés de liberté $=$ classes $- 1$, comparez avec $3.84$ à $p = 0.05$.
- Reconnaître la codominance, les allèles multiples, la liaison sexuelle, l'épistasie et la liaison — chacun modifie le ratio attendu.
- La méiose crée de la variation par recombinaison et assortiment indépendant — citez les deux.
- Écrivez les allèles codominants et liés au sexe avec des exposants ($\text{C}^\text{R}\text{C}^\text{W}$, $\text{X}^\text{H}\text{X}^\text{h}$), et représentez le chromosome Y sans allèle.
- Apprenez les rapports attendus : 3:1, 1:2:1 (codominance), 1:1 (croisement-test), 9:3:3:1 et 1:1:1:1 (dihybride), 9:3:4 (épistasie).
- De nombreux types parentaux et peu de recombinés dans un croisement-test dihybride indiquent que les gènes sont liés.
- Opéron lac : gène régulateur → répresseur ; le lactose se lie au répresseur et modifie sa forme, ce qui le détache de l’opérateur.
Leçons interactives sur ce sujet
Traversez-le étape par étape, avec des exercices à vérification instantanée.