Khóa học này là gì và cách sử dụng nó
Đây là khóa học thứ hai trong Y khoa Đại học: y khoa hóa sinh. MED01 đã xây dựng tế bào; khóa học này cung cấp nội dung — các phân tử, enzyme và dòng nhiên liệu duy trì sự sống của con người, cùng với hóa học mà y học lâm sàng đọc hàng ngày.
Phạm vi giới hạn, nêu rõ một lần: đây là khóa nghiên cứu, không phải bằng y khoa; mọi vụ việc dưới đây đều là giả tưởng và hoàn toàn không cấp phép hay hướng dẫn điều trị.
- Các đơn vị 2.1–2.2 là máy móc: protein và động học enzyme.
- Các đơn vị 2.3–2.4 là năng lượng: đường phân và động cơ oxy hóa.
- Các đơn vị 2.5–2.7 là lưu trữ và giao thông: glycogen, lipid, nitơ.
- Đơn vị 2.8 tích hợp: trạng thái no, nhịn ăn và đái tháo đường như một sổ sách chung.
Thói quen y học: cơ chế trước sự thật — mỗi hằng số enzyme, số lượng ATP và dòng nhiên liệu bên dưới đều là những thứ bạn tự tính toán lại, và mỗi liên kết lâm sàng đều chỉ ra bước bị lỗi.
Protein và cấu trúc protein
Tại sao nó quan trọng. Enzyme, chất vận chuyển, kháng thể, thụ thể — gần như mọi hoạt động của tế bào đều do protein thực hiện. Cấu trúc không phải sự trang trí: mỗi cấp độ xây dựng dựa trên cấp độ trước, và mỗi cấp độ là một nơi có thể bị đột biến phá vỡ. đột biến có thể làm hỏng.
Ý tưởng, kèm hình ảnh. Bốn cấp độ: nguyên phát (the amino-acid trình tự, đọc từ N→C), bậc hai ($\alpha$-xoắn, Trình tự, cách gập, hình dạng $\beta$D, tổ hợp — mỗi cấp độ là nơi đột biến có thể phá vỡ 3D phân lớp, lõi kỵ nước), bậc tư (lắp ráp tiểu đơn vị).

Định nghĩa kèm số liệu. 20 axit amin; liên kết peptide ~1.33 Å. The tham chiếu là hemoglobin (Hb): 4 tiểu đơn vị ($\alpha_{2}\beta_{2}$), 4 nhóm heme, 64.5 kDa, mỗi cái một O₂ — lên đến 4 O₂ mỗi phân tử.
O₂ đã liên kết sẽ làm chuyển các tiểu đơn vị từ trạng thái liên kết yếu T sang trạng thái liên kết mạnh R — sự liên kết giúp cho liên kết tiếp theo: hiệu ứng hợp đồng. Hệ số Hill O₂ liên kết chuyển các tiểu đơn vị từ trạng thái ái lực thấp T sang trạng thái ái lực cao R — sự liên kết giúp liên kết: tính cộng gộp. Hệ số Hill $n_H \approx 2.8$ (max 4) nói "gần như hoàn toàn cộng gộp". Lợi ích sinh lý: nạp đầy ở phổi ($pO_{2} \approx 100$ mmHg), khoảng 25 % thải ở mô nghỉ ngơi ($pO_{2} \approx 40$ mmHg) và trên 60 % trong cơ làm việc ($\approx 20$ mmHg), vì phần giữa dốc của đường cong sigmoid nằm chính xác trong khoảng đó. sigmoid sits exactly in that range.
Ví dụ minh họa 1 — phép tính tải máu. Máu mang ~15 g Hb/dL; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL ×4 sites = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL số liệu đo được là 22.4 mL/g, 1.39 mL O₂/dL ✓, thấp hơn một chút do measured figure is 1.34 mL/g, 20.1 mL O₂/dL ✓, a little lower because some haemoglobin is in forms that cannot carry O₂.
Worked example 2 — clinical link: one charged bead. (Fictional patient) HbS: one Glu→Val at position 6 of the β chain turns a charged surface patch hydrophobic; in the deoxy T state it docks into a pocket trên một tế bào lân cận, polymer hóa Hb và làm biến dạng tế bào thành hình liềm. Cấu trúc nguyên phát một hạt, thay đổi hành vi bậc bốn — và gây tắc mạch theo sau. Bệnh hồng cầu hình liềm là bệnh về cấu trúc nguyên phát với hậu quả bậc bốn.
Lỗi thường gặp. Đọc nhầm "denaturation" (biến tính) là phá vỡ liên kết peptide (nó làm mở cuộn; trình tự vẫn còn). Coi tất cả các đột biến đều nguy hiểm như nhau (thay đổi bảo toàn bề mặt có thể im lặng; thay đổi ở lõi hoặc vị trí hoạt động thì không thể). Quên mất các ligand của Hb (H⁺, CO₂, 2,3-BPG đều dịch chuyển đường cong — sinh lý học phụ thuộc vào những sự dịch chuyển này).
Tóm tắt. Trình tự → cuộn → 3D → lắp ráp; Hb là tetramer tham chiếu với liên kết sigmoid, đồng hợp tác ($n_H \approx 2.8$); một hạt (Glu6Val) có thể tái lập trình hành vi bậc bốn.
Enzyme và động học enzyme
Tại sao điều này quan trọng. Gần như mọi chẩn đoán trong xét nghiệm máu đều liên quan đến hoạt tính enzyme; hầu hết các loại thuốc đều là chất ức chế enzyme. Động học sinh hóa chính là cách biến các quá trình này thành có thể đo lường được — và đây là cách bạn sẽ đọc kết quả phòng thí nghiệm. Khái niệm, kèm theo hình ảnh. Enzyme làm giảm rào cản năng lượng kích hoạt nhưng không bị thay đổi sau khi phản ứng. Đường cong tốc độ phản ứng mang dạng Michaelis–Menten: sinh hóa trở nên định lượng được như thế nào — và cách bạn đọc kết quả phòng thí nghiệm.
Khái niệm, kèm hình ảnh. Enzyme làm giảm rào cản kích hoạt và không bị thay đổi bởi quá trình xúc tác. Đường cong tốc độ là Michaelis–Menten: $v = \frac{V_{max}[S]}{K_m + [S]}$, nơi $K_m$ là Sự suy luận (tại sao lại xảy ra bão hòa). E + S ⇌ ES → E + P: Ở nồng độ thấp
 tỷ lệ thuận bậc nhất với S. Ở nồng độ cao
Sự suy diễn (tại sao bão hòa). E + S ⇌ ES → E + P: ở nồng độ substrate thấp $[S]$, hầu hết E ở trạng thái tự do, nên $v \approx (V_{max}/K_m)\cdot[S]$ — một đường thẳng: giao điểm trục tung $[S]$, giao điểm trục hoành $v$. $V_{max}$ — phản ứng bậc không. Đường thẳng nghịch đảo kép (Lineweaver–Burk) $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ biến hyperbola thành hai lần rồi chia: $1/V_{max}$ ⇒ $-1/K_m$ mM,
Ví dụ minh họa 1 — đọc dữ liệu. Một enzyme tạo ra $v = 33$ µmol/min ở nồng độ $[S] = 1$ mM và $v = 60$ ở nồng độ $[S] = 4$ mM. Viết $v = V[S]/(K+[S])$ hai lần và chia: $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓. Check the half point: at $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
Ví dụ minh họa 2 — liên kết lâm sàng: chất ức chế cạnh tranh. (Bệnh nhân giả định dùng chất ức chế giống statin) một loại thuốc mô phỏng substrate and occupies the active site (competitive inhibition ): $K_m$ biểu kiến tăng lên, $V_{max}$ không đổi — có thể vượt qua bằng cách tăng chất nền, và các đường L-B cắt nhau TRÊN trục tung. Sự liên kết không cạnh tranh ở nơi khác làm giảm $V_{max}$ và để lại $K_m$ nguyên vẹn (các đường gặp nhau TRÊN trục hoành). Đọc đường nào di chuyển là cơ chế.
Lỗi thường gặp. Gọi $K_m$ là độ ái lực (nó là nồng độ; $K_m$ nhỏ tình cờ có nghĩa là độ ái lực biểu kiến cao). Fit hai điểm trong đầu mà không kiểm tra điểm thứ ba. Mong đợi chất ức chế thay đổi số lượng enzyme (induction mới làm; chất ức chế thay đổi hoạt tính).
Tóm tắt. $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ tại một nửa $V_{max}$; cạnh tranh: $K_m$↑ $V_{max}$ như cũ; không cạnh tranh: $V_{max}$↓ $K_m$ như cũ; giao điểm L-B xác định cái nào.
Sinh năng lượng và glycolysis
Tại sao nó quan trọng. Tế bào trả tiền cho mọi thứ bằng ATP, và tỷ lệ hoán đổi chính xác: phản ứng ghép nối chỉ diễn ra theo chiều xuống về năng lượng tự do. Glycolysis là cách cổ xưa nhất, được bảo tồn nhiều nhất để tạo ATP — và mỏ neo trao đổi chất của mọi đơn vị sau này. Ý tưởng, kèm hình ảnh. Ghép nối: một phản ứng bất lợi chỉ xảy ra
Khái niệm, kèm hình ảnh. Coupling: một phản ứng bất lợi chỉ xảy khi được ghép với một phản ứng thuận lợi ($\Delta G$ cộng thêm). Glycolysis phân tách một phân tử glucose (6 C) thành hai phân tử pyruvate (3 C): giai đoạn đầu tư giai đoạn tiêu thụ (2 ATP đã dùng), giai đoạn thu hồi (4 ATP + 2 NADH được tạo thành), lợi nhuận ròng 2 ATP + 2 NADH ✓ — không phụ thuộc vào oxy.

Các định nghĩa kèm số liệu. Ba bước gần như không thuận nghịch ($\Delta G^{\circ\prime}$ âm mạnh): hexokinase (−16.7 kJ/mol), PFK-1 (−14.2, là bước cam kết chính và điểm điều hòa), pyruvate kinase (−31.4). Không có O₂, NAD⁺ được tái sinh bằng cách lactate dehydrogenase: pyruvate + NADH → lactate (lên men).
Sự suy luận (tại sao PFK-1 là cửa ngõ). Lý thuyết điều khiển nói: cửa ngõ là bước cam kết đầu tiên và không thuận nghịch. Hexokinase đã cam kết trước (các loại đường khác cũng sử dụng nó); pyruvate kinase quá muộn (việc đầu tư đã hoàn tất). PFK-1 là bước đầu tiên duy nhất của đường phân giải — do đó AMP và ADP kích hoạt nó; ATP và citrate ức chế nó; fructose-2,6- bisphosphate (tín hiệu insulin) kích hoạt nó rất mạnh. Một enzyme quan sát toàn bộ trạng thái năng lượng của tế bào.
Ví dụ minh họa 1 — sổ sách ATP. Mỗi phân tử glucose: −2 (đầu tư) +4 (thu lợi) = lợi nhuận ròng 2 ATP; cộng thêm 2 NADH (trong bào tương — có giá trị 5 ATP thông qua mạch malate hoặc 3 qua glycerol phosphate, đơn vị 2.4). Trong điều kiện yếm khí, số 2 NADH bị tiêu thụ để khử lại pyruvate thành lactate: năng suất thành đạt chính xác 2 ATP ✓.
Ví dụ minh họa 2 — liên kết lâm sàng: Cổng không thể mở. (Bệnh nhân giả tưởng) co giật cơ trong vòng vài giây sau khi chạy nước rút, không có sự gia tăng lactate máu: phosphorylase cơ vẫn hoạt động (glycogen phân hủy) nhưng PFK-1 bị thiếu hụt — các phosphate đường tích tụ trước cửa ngõ, giai đoạn thu hồi không bao giờ đến, ATP giảm và myoglobin bị rò rỉ. Một cửa ngõ, một hội chứng khi vận động: bước điều hòa là vị trí bệnh lý.
Những sai lầm thường gặp. Đếm tổng ATP khi đề bài yêu cầu tính ATP ròng. Đặt điểm điều hòa tại các bước thuận nghịch (điều hòa tồn tại ở các bước không thuận nghịch). Quên rằng sự tái tạo NAD⁺ yếm khí là MỤC ĐÍCH khiến lactate hình thành (không phải sản phẩm thải — mà là nhu cầu oxy hóa khử).
Tóm tắt. Glucose → 2 pyruvate, thu được 2 ATP + 2 NADH ròng, ba cổng không thuận nghịch với PFK-1 quyết định; AMP/ADP bật, ATP/citrate tắt; lactate mua lại NAD⁺ khi O₂ hết.
Chu trình TCA và phosphoryl hóa oxy hóa
Tại sao nó quan trọng. Oxy chỉ có một nhiệm vụ trong cơ thể: nhận electron ở cuối chuỗi truyền dẫn. Chu trình TCA biến đổi các đơn vị acetyl thành những electron đó, và ATP synthase biến chúng thành nhập vào ~90% ATP của cơ thể. Đơn vị này là nơi mà quá trình chuyển hóa năng lượng trở nên định lượng.
Ý tưởng, kèm hình ảnh. Chu trình TCA (Krebs): acetyl-CoA (2 C) + oxaloacetate (4 C) → citrate (6 C) → hai lần decarboxyl- hóa quay trở lại oxaloacetate, tạo ra mỗi acetyl: 3 NADH, 1 FADH₂, 1 GTP. Chuỗi truyền electron (màng trong ti thể): các phức hợp I, III, IV bơm H⁺ ra ngoài; dòng chảy quay thông qua ATP synthase để tổng hợp ATP.
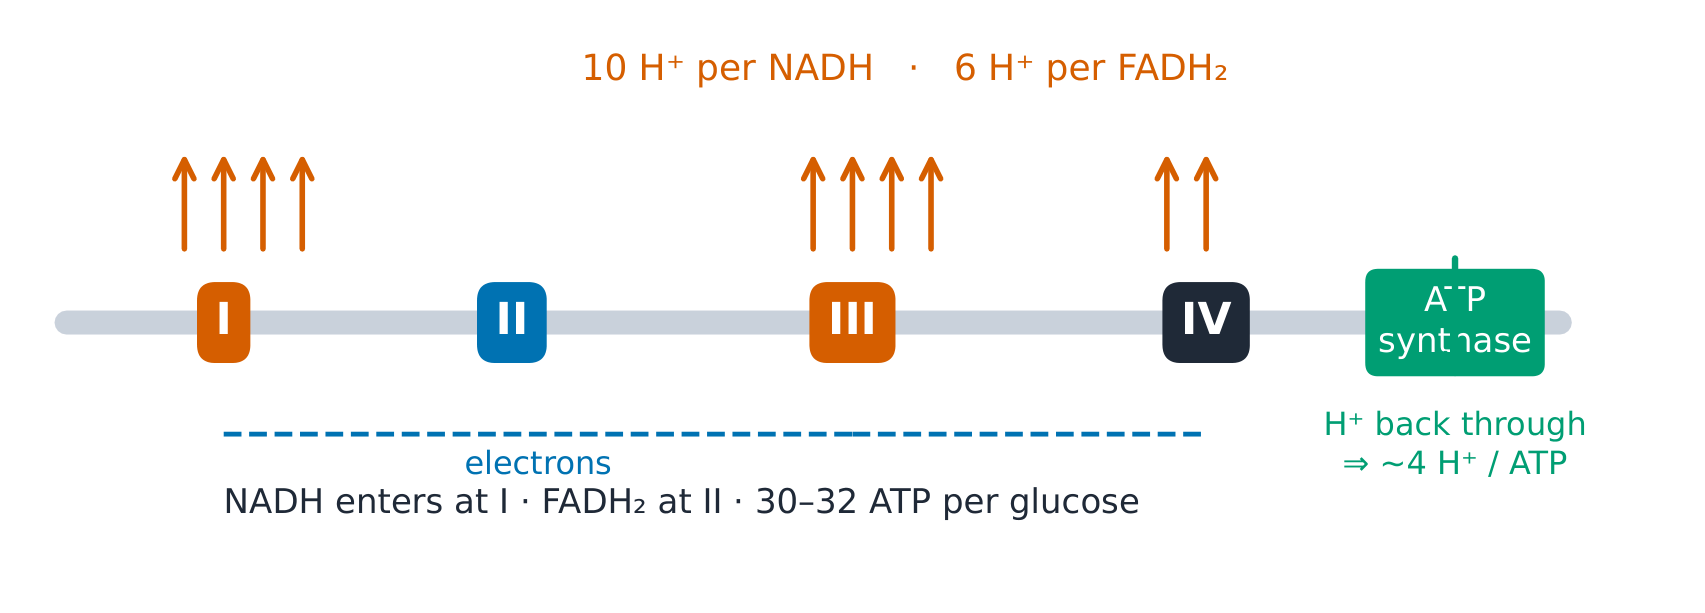
Sự suy diễn (số lượng ATP hiện đại). Mỗi NADH: các phức hợp I+III+IV bơm 4+4+2 = 10 H⁺; mỗi FADH₂ (nhập tại II): III+IV = 6 H⁺. ATP synthase cần ~3 H⁺/ATP plus 1 H⁺ để vận chuyển Pi vào: 4 H⁺/ATP. Vì vậy NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — và mỗi glucose, counting every carrier: 2 (glycolysis ATP) + 2×2.5 (its NADH, malate shuttle) + 2×2.5 (pyruvate dehydrogenase NADH) + 2 GTP + 6×2.5 (TCA NADH) + 2×1.5 = 32 ATP with the malate shuttle, 30 with glycerol phosphate (the older "36–38" used the rounded P/O of 3 "glycolysis ngược lại miễn phí" (nó tốn 2 phosphat năng lượng cao).
Worked example 1 — acetyl arithmetic. One glucose → 2 pyruvate → 2 acetyl-CoA (2 NADH từ pyruvate dehydrogenase). Với pyruvate dehydrogenase, hai vòng TCA cộng với sự đi vào tạo ra 2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 ATP tương đương — ba phần tư của tổng ngân sách hiếu khí (25 của 32), tất cả đều đến từ các cặp electron đang được vận chuyển đến O₂.
Ví dụ có hướng dẫn 2 — liên kết lâm sàng: tua-bin bị tắc. (Vignette quá liều giả tưởng) sập nguồn với máu tĩnh mạch màu đỏ tươi: cyanide gắn vào (tình huống quá liều) suy sụp với máu tĩnh mạch màu đỏ tươi: cyanide liên kết phức hợp IV, electron không thể đến O₂, bơm ngừng hoạt động, gradient sụp đổ và ATP synthase ngừng (nó thậm chí có thể chạy ngược, tiêu tốn ATP). Hóa học giải thích các dấu hiệu: mô không thể lấy O₂ (máu tĩnh mạch vẫn đỏ), lactate cạnh tranh vượt trội với điểm tắc — cơ chế trước, thuốc giải độc sau. Lỗi thường gặp. Nói rằng chu trình "tạo ATP" trực tiếp (nó tạo ra
Lỗi thường gặp. Nói chu trình "tạo ATP" trực tiếp (chu trình tạo GTP + chất mang khử; chuỗi truyền điện tử tạo ra gradient). Đếm CO₂ là từ "các carbon acetyl của vòng này" (chúng bị loại bỏ ở các vòng SAU — chu trình trộn lẫn các carbon của nó). Sử dụng P/O 3 và 2 mà không nêu rõ quy ước nào.
Tóm tắt. Acetyl → 3 NADH + 1 FADH₂ + 1 GTP mỗi vòng; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP mỗi glucose (đếm hiện đại, tùy thuộc vào hệ thống vận chuyển); phức hợp IV là nơi oxy thu hồi giá trị của nó.
Glycogen và gluconeogenesis
Tại sao điều này quan trọng. Não tiêu thụ ~120 g glucose mỗi ngày và không lưu trữ. Giữa các bữa ăn, cơ thể sống dựa vào hai kho glucose với chủ sở hữu khác nhau — và trong thời gian nhịn ăn, nó phải tạo ra glucose từ đầu. chủ sở hữu — và trong thời kỳ nhịn ăn, gan phải tạo glucose từ đầu.
Ý tưởng, kèm hình ảnh. Glycogen: polymer glucose có nhánh ($\alpha 1\to4$ chuỗi, $\alpha 1\to6$ nhánh mỗi ~8–12 lưu trữ ~100 g — giữ lại, tiêu thụ tại chỗ. lưu trữ ~400 g — giữ lại, đốt cháy tại chỗ.

Định nghĩa bằng số liệu. Glycogen phosphorylase cắt liên kết $\alpha1\to4$ (phosphorolysis, không tiêu tốn ATP); enzyme cắt nhánh handles the $\alpha1\to6$ stubs. Gluconeogenesis reverses glycolysis tăng cường qua ba điểm kiểm soát — với chi phí 4 ATP + 2 GTP
- 2 NADH trên mỗi glucose (6 phosphate năng lượng cao, so với lợi nhuận ròng của glycolysis là 2).
Sự phân biệt (tại sao hai mô). Cơ bắp thiếu glucose-6-phosphatase: glucose-6-P của nó bị khóa và cung cấp cho quá trình phân giải glucose — bạn không thể xuất ra ngoài những gì mà không thể khử phosphat. Gan CÓ enzyme phosphatase: glycogen → không thể khử phosphoryl. Gan CÓ phosphatase: glycogen → glucose-1-P → glucose-6-P → glucose tự do → máu. Sự hiện diện hoặc vắng mặt của một enzyme xác định vai trò cơ quan; hormone điều tiết nó — (glycogen không bao giờ trở thành glucose máu). Tính gluconeogenesis như glucagon (chỉ gan) kích thích phân hủy, insulin kích thích tổng hợp.
Ví dụ minh họa 1 — Ngân sách qua đêm. Glycerogen gan ~100 g ≈ 400 kcal; não cần ~120 g/ngày ≈ 480 kcal/ngày. Kho dự trữ này đủ cho khoảng một ngày sử dụng của não ✓ — sau 12–24 h nhịn ăn, quá trình tạo glucose mới phải đảm nhận (amino acid từ cơ, glycerol từ mỡ, lactate thông qua chu kỳ Cori).
Ví dụ minh họa 2 — Liên kết lâm sàng: Người chạy bộ không thể dùng được kho dự trữ. (Giả tưởng) co giật và nước tiểu sẫm màu sau khi sprint: enzym phosphorylase bị thiếu hụt (kiểu McArdle) — glycerogen được lưu trữ nhưng không thể tiếp cận, ATP giảm, myoglobin rò rỉ ra ngoài, và sự gia tăng lactate dự kiến không bao giờ xảy ra. Kết quả xét nghiệm chính là cơ chế: thiếu lactate với cố gắng tối đa định vị điểm gián đoạn trước cổng đường phân.
Lỗi thường gặp. Coi hai kho glycerogen là một (glycerogen cơ không bao giờ trở thành Chylomicron và VLDL vận chuyển; LDL thả ra; HDL quay về — bản đồ vận chuyển mỡ "glycolysis backwards for free" (it costs 6 high-energy phosphates). Placing glucagon receptors on muscle (there are none).
Summary. Liver ~100 g exports (has the phosphatase); muscle ~400 g enzym branching xây dựng; glucagon/insulin đặt tín hiệu; quá trình tạo glucose mới Chylomicrons và VLDL vận chuyển; LDL hạ xuống; HDL quay lại — bản đồ vận tải chất béo chi phí 4 ATP + 2 GTP + 2 NADH mỗi phân tử glucose.
Stoff chuyển hóa lipid
Tầm quan trọng. Chất béo là kho năng lượng dài hạn của cơ thể — và vấn đề tắc nghẽn giao thông nặng nề nhất: không tan trong nước, lipid cần một hệ thống vận chuyển mà sự suy yếu của nó là nguyên nhân của bệnh phổ biến nhất trên thế giới.
Khái niệm, kèm hình ảnh. Oxidation β tại ti thể: mỗi chu trình cắt bỏ 2 C khỏi acyl-CoA, tạo ra 1 acetyl-CoA + 1 FADH₂ + 1 NADH. Vận chuyển: lipoprotein — chylomicron (ruột → mô), VLDL (gan → mô), LDL (cholesterol đến mô — người vận "xấu"), HDL (cholesterol trở về gan — người vận "tốt").

Cách tính toán (số lượng palmitate). Palmitate (C16): $\beta$- oxidation cần $(16/2) - 1 = 7$ chu kỳ → 8 acetyl-CoA + 7 FADH₂ + 7 NADH. Thu hoạch: mỗi acetyl tương đương 10 đơn vị qua chu trình ($3\times2.5 + 1.5 + 1$), nên 8 acetyl tạo ra 80; số 7 FADH₂ tạo ra $7\times1.5 = 10.5$ and the 7 NADH give $7\times2.5 = 17.5$; minus 2 cho việc kích hoạt: 106 ATP mỗi palmitate ✓ — so với 30–32 mỗi phân tử glucose: chất béo trả giá cao gấp nhiều lần theo mỗi carbon, vì nó gần như hoàn toàn đã giảm.
Ví dụ minh họa 1 — ketone, nhiên liệu của não bộ. Cạn kiệt dinh dưỡng kéo dài: acetyl-CoA từ β-oxidation vượt quá chu trình TCA (OAA bị chuyển hướng sang tạo đường mới), nên gan tổng hợp chúng thành thân thể ketone (acetoacetate, β-hydroxybutyrate) và xuất ra ngoài — tan trong nước, crossing to the brain, worth ~21.5 ATP per β-hydroxybutyrate. By day 3 tuần lên đến hai phần ba, bảo vệ protein cơ ✓. oxy hóa rất ít acid béo — ketone thay thế chúng).
Ví dụ minh họa 2 — liên hệ lâm sàng: động cơ không có tia lửa. (Trẻ sơ sinh giả định) hạ đường huyết thiếu ketone do đói ăn: enzym acyl-CoA dehydrogenase bị thiếu hụt, β-oxidation ngừng trệ, không thể tạo ra ketone VÀ không có ATP để thúc đẩy quá trình tạo đường mới — sự thất bại kép này giải thích CẢ HAI kết quả xét nghiệm. Dấu hiệu chẩn đoán (glucose thấp KÈM theo ketone thấp) là cơ chế được đọc từ một giọt máu trên giấy thử.
Lỗi thường gặp. Quên chi phí kích hoạt (−2 tương đương) trong tính toán ATP. Cho rằng não đốt cháy acid béo chuỗi dài (nó oxidises very little fatty acid — ketones are its substitute). Gọi LDL là "cholesterol" (đó là hạt VẬN CHUYỂN).
Tóm tắt. β-oxidation: C16 → 8 acetyl-CoA + 7×(FADH₂+NADH) → 106 ATP ròng; chylomicron/VLDL vận chuyển đi, LDL giao hàng, HDL thu hồi; khi đói ăn, gan trở thành nơi xuất ketone. gan là cơ quan xuất thể ketone.
Chuyển hóa nitơ và chu trình urea
Tầm quan trọng. Nitơ không thể lưu trữ: mọi axit amin không cần thiết trong ngày đều phải khử amin ngay hôm nay, và amoniac giải phóng ra có độc tính thần kinh ở nồng độ micromolar. Việc đào thải không phải là tùy chọn — nó là một quá trình năm bước diễn ra trên hai ngăn tế bào.
Ý tưởng, kèm hình ảnh. Nhóm amin được thu gom về glutamate (transamination: axit amin + α-ketoglutarate ⇌ axit keto + glutamate), sau đó khử amin oxy hóa giải phóng NH₃ trong ti thể gan. Chu trình urea diễn ra qua cả ti thể và bào tương: chu trình urea diễn ra qua cả ti thể và bào tương: NH₃ + CO₂ → phosphat carbamoyl → citrulline → (bào tương) arginino- Năm enzyme, hai ngăn tế bào, một phân tử tan trong nước mang hai nguyên tử nitơ ra ngoài

Nồng độ amoniac bình thường trong máu chỉ khoảng ~2–₃ µmol/L — mức rất thấp, vì não một từ aspartate), tiêu tốn 3 ATP (4 liên kết năng lượng cao) cho mỗi phân tử urea. Nồng độ amoniak trong máu bình thường chỉ khoảng ~10–35 µmol/L — mức rất chặt chẽ, vì não phải nằm trước dòng máu hệ thống: máu portal từ đường tiêu hóa chảy thẳng vào gan, nơi loại bỏ axit amin và
Sự hình thành (tại sao là gan, tại sao ở đó). Giải độc amoniak phải nằm ở phía trước hệ tuần hoàn: máu portal từ ruột chảy thẳng vào gan, nơi thu hồi axit amin và ammonia trong lần đi đầu tiên. Não và cơ bắp không thể gánh chịu chi phí của chu trình này — chúng xuất nitrogen dưới dạng glutamine (xe chở ammonia) và alanine (xe chở carbon-nitrogen) để gan xử lý. Vị trí chính là hệ thống an toàn. tiêu tốn — chúng xuất nitơ dưới dạng glutamine (xe tải amoniak) và alanine (xe tải carbon và nitơ) để gan xử lý. Vị trí chính là hệ thống an toàn.
Ví dụ minh họa 1 — sổ sách hàng ngày. Chế độ ăn thông thường chuyển hóa ~70–100 g protein/day ≈ 11–16 g N; excreted almost entirely as urea (25–35 g/ngày). Kiểm tra chéo: mỗi phân tử urea chứa 2 N (28 g của 60 g phân tử = 47 % N theo khối lượng): 30 g urea × 0.47 ≈ 14 g N ✓ — nước tiểu khớp với chế độ ăn.
Ví dụ minh họa 2 — liên kết lâm sàng: băng chuyền bị tắc. (Em bé sinh mới giả tưởng) lười biếng rồi hôn mê sau bữa ăn đầu tiên, nồng độ amoniak tăng vọt, orotic acid trong nước tiểu: thiếu hụt ornithine transcarbamylase — cái chu trình bị tắc tại bước 2, carbamoyl phosphate tràn vào con đường tổng hợp pyrimidine tổng hợp (do đó có orotate). Quản lý theo cơ chế đầu tiên sẽ tuân theo cản: hạn chế lượng nitơ đưa vào, loại bỏ ammonia, bổ sung các chất thay thế — sinh hóa học đã viết nên quy trình này.
Lỗi thường gặp. Viết "urea loại bỏ ammonia" (thực tế nó loại bỏ HAI nguyên tử nitơ: NH₃ và nhóm amino của aspartate). Ngờ rằng enzyme chu trình urea có trong não (chỉ có ở gan; đó là lý do ammonia tấn công não). Uniqueness of forgetting ATP cost (xử lý nitơ rất tốn kém: 4 liên kết).
Tóm tắt. Transamination dẫn nitơ vào glutamate; chu trình gan (2 ngăn, 5 enzyme) tổng hợp urea với 3 ATP mỗi lần, xuất khẩu 2 nitơ; glutamine và alanine là phương tiện vận chuyển; tăng amoni kèm orotate chỉ điểm OTC.
Tích hợp chuyển hóa: trạng thái no, nhịn ăn và đái tháo đường
Tại sao quan trọng. Chuyển hóa là một hệ thống có công tắc. Insulin và glucagon là cần gạt, các cơ quan là bộ truyền, và đái tháo đường là công tắc bị kẹt — ví dụ tích hợp mang tính giáo dục nhất trong y học.
Ý tưởng, kèm hình ảnh. Trạng thái cho ăn (insulin cao): glucose vào tất cả tế bào, glycogen đầy, carbon dư thừa thành mỡ. Trạng thái nhịn ăn (glucagon cao): phân giải glycogen gan (kéo dài vài giờ) → tạo glucose mới (vài ngày) → sinh thể ketone (não thích nghi). Một sổ sách nhiên liệu, ba chế độ thời gian.

Định nghĩa kèm số liệu. Não ~120 g glucose/ngày. Glycogen gan ~100 g (~một ngày). Ketone cung cấp khoảng một phần ba năng lượng não vào ngày 3 của giai đoạn nhịn, và lên tới hai phần ba sau vài tuần. Mốc chẩn đoán: HbA1c ≥ 6.5 % chỉ ra bệnh đái tháo đường — sự glycosyl hóa haemoglobin tích lũy trong vòng đời ~120 ngày của hồng cầu, tích hợp nồng độ glucose giống như băng ghi âm.
Sự dẫn xuất (mạch chuyển đổi). Một biến số — là thức ăn đang được cung cấp? — phải thiết lập các mũi tên của MỌI cơ quan một cách đồng bộ. Một cặp hormone có tác dụng ngược nhau lên cùng một loại enzyme (PFK-2, glycogen synthase, phosphorylase, lipase) thực hiện điều này: glucagon làm tăng cAMP, nên PKA phosphoryl hóa chúng; insulin làm giảm cAMP (phosphodiesterase bật) và kích hoạt phosphatase, khiến cùng những enzyme này mất đi nhóm phosphate. Sự tinh tế nằm ở chỗ MỘT tín hiệu, thay vì bảy tín hiệu, giữ cho 4 cơ quan không hoạt động trái chiều — và bệnh đái tháo đường cho thấy mức độ thiệt hại khi các cơ quan hoạt động trái chiều.
Ví dụ minh họa 1 — timeline của quá trình nhịn ăn. Giờ 0 (bữa ăn kết thúc): glucose giảm. Các giờ 0–4: nhiên liệu hấp thụ được sử dụng, insulin giảm. Các giờ 4–12: glycogen gan bị huy động. Các giờ 12–24: nguồn dự trữ cạn kiệt, gluconeogenesis ramp (axit amin cơ, glycerol, lactate). Ngày 1–3: protein tiết kiệm bắt đầu khi ketone tăng. Ngày 3: khoảng một phần ba năng lượng não từ ketone; vài tuần: lên tới hai phần ba ✓ — mỗi sự chuyển tiếp chính là cơ chế của đơn vị trước, được định thời gian.
Ví dụ minh họa 2 — liên hệ lâm sàng: công tắc bị kẹt, cả hai chiều. (Bệnh nhân giả định) hình ảnh type 1: không có insulin, do đó mặc dù glucose cao nhưng tế bào đọc là NHỊN ĂN — mỡ chảy ra, ketone tràn ngập (nhiễm toan, thở Kussmaul để phổi bù trừ), cơ thể phân hủy, nước tiểu mất glucose và nước (tiểu nhiều thẩm thấu, khát nước). Mỗi triệu chứng đều mất glucose và nước (tiểu đường thẩm thấu, khát nước). Mỗi triệu chứng đều một công tắc được đọc bởi bốn cơ quan. Loại 2 hình ảnh: insulin hiện diện nhưng bị kháng — cùng sổ sách, mũi tên dịu hơn, tính bằng năm thay vì giờ.
Lỗi thường gặp. Đọc insulin chỉ là "giảm glucose" (nó thiết lập hướng cho TẤT CẢ các nhiên liệu). Coi nhu cầu glucose của não là có thể thương lượng (ketone chỉ thay thế một phần và cần vài ngày). Nhầm lẫn HbA1c (3 tháng trung bình) với kết quả đo glucose (phút).
Tóm tắt. Insulin/glucagon = một cần gạt trên tất cả các cơ quan; ăn → lưu trữ, đói → phân giải glycogen → tạo đường mới → ketone theo chu kỳ ~24 h / 3 ngày đồng hồ; HbA1c ≥ 6.5 % tích hợp toàn bộ quá trình; acidosis keto do tiểu đường là chuyển hóa khi đói diễn ra kèm theo nồng độ glucose cao.