このコースとは何か、および使い方は
This is the second course in University Medicine: medical biochemistry. MED01 built the cell; this course fills it — 変異によって破壊され得る。 臨床医学が毎日扱う生化学
範囲の制限(一回のみ記載): 学術課程であり、医学学位ではありません。以下のすべての 症例は架空であり、本資料は治療の許可やガイドラインを提供するものではありません。
- 単元 2.1–2.2 はメカニズム:タンパク質と酵素動力学。
- 単元 2.3–2.4 はエネルギー:糖解系と酸化燃焼装置。
- 単元 2.5–2.7 は貯蔵と輸送:グリコーゲン、脂質、窒素。
- 単元 2.8 は統合:摂食状態、空腹時、糖尿病を一つの帳簿として扱います。
医療の習慣:事実よりメカニズム — すべての酵素定数、 ATP数、燃料の流れは以下で再計算すべきものであり、すべての 臨床的関連性は破綻したステップを指し示します。
タンパク質とタンパク質構造
重要性。 エンザイム、輸送体、抗体、受容体 — 細胞が行うほぼすべての機能を、タンパク質が担っています。構造は単なる装飾ではなく、 各レベルが前段階の上に構築され、どのレベルも変異によって機能不全を引き起こす可能性があります。 mutation can break.
The idea, with a picture. Four levels: primary (the amino-acid sequence, read N→C), secondary ($\alpha$-helix, $\beta$-sheet, held by backbone H-bonds), tertiary (the full 3D fold, hydrophobic core), quaternary (subunit assembly).

数値を伴う定義。 20 アミノ酸;ペプチド結合 ~1.33 Å。この 参照タンパク質はヘモグロビン(Hb)です: 4 サブユニット ($\alpha_{2}\beta_{2}$)、 4 ヘム基、 64.5 kDa、それぞれ1つのO₂ — 最大で 4 O₂ を分子あたり保持します。
導出(コオペアリティ)。 ミオグロビンはO₂ と単純な 双曲線結合を示しますが、ヘモグロビンはS字状のシグモイド結合を示します。なぜなら、 結合したO₂ がサブユニットを低親和性のT状態から 高親和性R状態 — 結合が他の結合を助ける:協同性。ヒル係数 $n_H \approx 2.8$ (最大4)であり、「ほぼ完全にコオペアリティがある」ことを示します。生理学的 payoff: full loading in lungs ($pO_{2} \approx 100$ mmHg), about 25 % 安静時組織での解除($pO_{2} \approx 40$ mmHg)および、それより高い60 %以上 運動筋($\approx 20$ mmHg)で起こる。これは、シグモイド曲線の急峻な中央部がちょうどこの範囲に位置するためである。 シグモイド曲線はこの範囲に正確に位置している。
演習例 1 — 負荷の計算。 血液は ~15 g Hb/dLを運搬します; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL ×4 sites = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL / mmol)— 理論的な1.39 mL O₂ / g Hb。 測定値は1.34 mL/g、20.1 mL O₂/dL ✓ であり、若干低いのは、 ヘモグロビンの一部は、O₂を運搬できない形態である。
演習例 2 — 臨床的関連:1つの電荷を持つビーズ。 (架空の 患者)HbS:β鎖の位置6 で1つのGlu→Valの変異により、 電荷を持つ表面領域が疎水性となり、脱酸素T状態でポケットにドッキングします 隣接分子に作用し、ヘモグロビンを重合させて細胞を Sickling(鎌状化)させる。一次 構造、すなわち一つのビーズが変化した四級構造の挙動——そして血管閉塞が 続く。鎌状赤血球症は四級構造への影響を伴う一次構造疾患である。 四次元構造の影響。
よくある間違い。「変性」をペプチド結合の切断と誤解すること。 同等の重症度とみなすこと(表面の保守置換は無効な場合があるが、コアや 同等に深刻である(表面の保守的置換は沈黙的になり得るが、中心部や 活性部位の置換はそうではない)。Hbのリガンドを忘れること(H⁺、CO₂、2,3-BPGはすべて 曲線をシフトさせる — 生理学的にはこれらのシフトが重要である)。
要約。 配列 → 折りたたみ → 3D → 組み立て;Hbは参照値である ビーズ(Glu$n_H \approx 2.8$Val)が四級構造の挙動を再設定できる。 ビーズ(Glu6Val)が四級構造の振る舞いを再構成できる。
エンザイムと酵素反応速度論
重要性。 血液検査パネルのほぼすべての診断値は酵素活性であり、ほぼすべての薬物は酵素阻害剤である。速度論とは、生化学が測定可能なものとなる方法であり、あなたがラボ結果を読むための手法である。 生化学を定量化する手段であり、あなたが実験室データを読むための方法でもある。 概念と図示。 酵素は活性化エネルギー障壁を低下させ、使用によって自身は変化しない。速度曲線はミカエリス・メンテン式である:
概念と図。 酵素は活性化障壁を下げる 使用によって変化しない。速度曲線はミカエリス–メンテン型である: $v = \frac{V_{max}[S]}{K_m + [S]}$、ここで$K_m$は 半最大反応速度における基質濃度です。

飽和の導出(理由) E + S ⇌ ES → E + P:低濃度域で $[S]$では、ほぼすべてのEは遊離しているため、$v \approx (V_{max}/K_m)\cdot[S]$ は — Sに対して1次である。$[S]$が高いとき、すべてのEがESとして存在するため、$v$ は $V_{max}$ に漸近し、0次となる。逆数プロット(ラインウィーバー–バーク)直線 $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ は双曲線を 直線に変換する:y切片が$1/V_{max}$、x切片が$-1/K_m$。
演習例 1 — データの読み取り。 酵素は $v = 33$ µmol/min の速度を示す $[S] = 1$ mM および $v = 60$ は $[S] = 4$ mM で示される。$v = V[S]/(K+[S])$ を書く 二回繰り返して除算する:$33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, ** worked example $V_{max} = 33\times2.5 = 82.5$ — 臨床的関連:競合阻害剤。** $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
計算例 2 — 臨床的関連:競合阻害剤。 (スタチン類似阻害薬を投与された架空の患者)薬物は 基質を模倣し活性部位を占めます(競合阻害 ): 見かけの$K_m$が上昇し、 $V_{max}$は変化せず — 基質を増やすことで克服され、L-B曲線は はy軸上で交差します。他の部位での非競合結合は $V_{max}$を示し、$K_m$のみを残す(曲線はx軸上で交差する)。読み取り どの直線が移動したかを読み取ることでメカニズムが判明します。
一般的な間違い。 $K_m$を親和性と呼ぶこと(それは濃度である; 小さな$K_m$は実際には高い見かけの親和性を意味する)。2点 fitting 頭の中で計算し、3点を確認せずに。阻害剤が変化するのを期待する 酵素量(inductionは変化させる;阻害剤は活性を変える)。
要約。 $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ at half-$V_{max}$; competitive: $K_m$↑ $V_{max}$同じ; non-competitive: $V_{max}$↓ $K_m$同じ; L-B切片で識別可能。
バイオエネルギクスと糖解系
重要性。 細胞はすべてATPで支払いを行い、通貨交換は正確である:結合反応は自由エネルギーが下がる方向にのみ進行する。 エネルギー。糖解系は最も古い、かつ最も保存されたATP生成方法であり、 その後のすべての代謝ユニットの中心的な基盤である。 後のすべての単位の代謝的な基準点です。
概念と図解。 結合:不利な反応が進行する際に $\Delta G$ NADH** ✓ — 酸素に依存しない。 は1つのグルコース(6 C)を2つのピルビン酸(3 C)に分割する:投資 相(2 ATP消費)、リターン相(4 ATP + 2 NADH生成)、正味2 ATP + 2 NADH ✓ — 酸素には依存しない。

数値を伴う定義。 3つの本質的に不可逆なステップ ($\Delta G^{\circ\prime}$で強く負): ヘキシンキナーゼ (−16.7 kJ/mol)、PFK-1 (−14.2、コミットメント段階であり主要な 制御)、ピルビンキナーゼ (−31.4)。O₂がない場合、NAD⁺は再生されるが、 ラクト酸脱水素酵素: ピルビン + NADH → ラクト酸によって再生される (発酵)。
PFK-1がゲートとなる理由の導出。 制御理論によれば: ゲートは 最初のコミットメントされ不可逆的な段階であるべき。ヘキソキナーゼは事前コミット (他の糖もこれを使う); ピルビンキナーゼでは遅すぎる(投資は すでに完了している)。PFK-1は糖解路に固有な最初の反応なので、 AMPおよびADPが活性化し、ATPおよびクエン酸が阻害する;フルクトース-2,6- ビスホスファート(インスリンシグナル)が強く活性化する。一つの酵素が 細胞全体のエネルギー状態を把握する。
演習例 1 — ATP計算書。 グルコースあたり:−2(投資)+4 (リターン)= 正味2 ATP;+ 2 NADH(細胞質由来 — malateシャトルにより5 ATP相当、または malate shuttle or 3 via glycerol phosphate, unit 2.4). Anaerobically ** worked example 2 — 臨床的関連:開かないゲート。** ** worked example 2 — 臨床的関連: 開かないゲート。**
演習例 2 — 臨床的関連:開かないゲート。 (架空の患者) スプリント開始後数秒で筋肉痙攣、血中ラクト酸の上昇なし: 筋ホスファラーゼは機能し(グリコーゲンが分解される)、 blood lactate: muscle phosphorylase works (glycogen breaks down) but PFK-1 is deficient — sugar phosphates pile up before the gate, the payoff never comes, ATP falls and myoglobin spills. One gate, one exertional syndrome: the regulated step が病変部位である。
よくある間違い。 正味ではなく総ATPを数えること。可逆反応に 調節を置くこと(調節は不可逆の ゲートに存在する)。無酸素条件下でのNAD⁺再生がラクト酸生成の「理由」であることを忘れること (廃棄物ではなく、酸化還元平衡のための必須事項)。
まとめ。 グルコース → 2 ピルビン、正味 2 ATP + 2 NADH、3つの 不可逆ゲートでPFK-1がコミットメント;AMP/ADPがON、ATP/クエン酸がOFF; O₂がない場合、ラクト酸はNAD⁺を買う。
TCA回路と酸化的リン酸化
重要性。 体内における酸素の唯一の役割は、電子伝達鎖の末端で電子を受け取ることである。TCA回路は アセチル単位をその電子に変換し、ATP合成酵素はそれらの acetyl units into those electrons, and the ATP synthase turns their fall into ~90 % of the body's ATP. This unit is where energy metabolism becomes quantitative.
概念と図。 TCA回路(クレブス回路): acetyl-CoA (2 C) + oxaloacetate (4 C) → citrate (6 C) → two decarbox- FADH3, 1 GTP** を産生する。電子伝達鎖(内 FADH₂, 1 GTP**. The electron transport chain (inner mitochondrial membrane): complexes I, III, IV pump H⁺ out; the return ATP合成酵素を通過する。ATP合成酵素はATPを生成する。
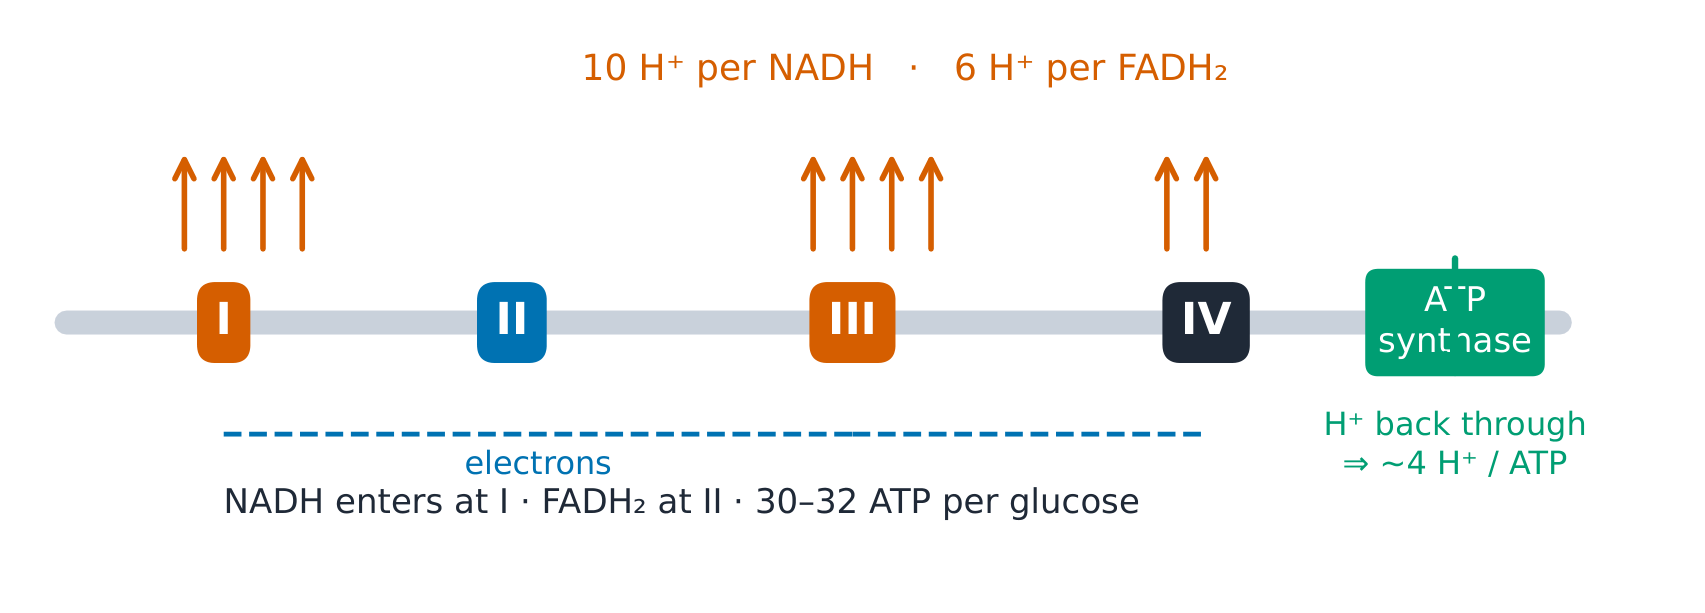
導出(現代のATP数)。 NADHあたり:複合体I+III+IV ポンプ 4+4+2 = 10 H⁺;FADH₂あたり(IIでの進入):III+IV = 6 H⁺。 ATP synthase needs ~3 H⁺/ATP plus 1 H⁺ to import Pi: 4 H⁺/ATP. So NADH ≈ 10/4 = 2.5 ATP、FADH₂ ≈ 6/4 = 1.5 ATP ✓ — かつ、 グルコースあたり、すべてのキャリアを数えると:2(糖解系ATP)+ 2×2.5(その NADH、メレートシャトル)+ 2×2.5(ピルビン脱水素酵素NADH)+ 2 GTP + 6×2.5(TCA回路NADH)+ 2×1.5 = 32 ATP(メレートシャトルの場合)、30 グリセリンリン酸との連動。古い「36–38」は3の丸めたP/O比と 2を用いた)。
** worked example 1 — アセチル計算。** 1分子のブドウ糖 → 2 ピルビン → 2 アセチルCoA(ピルビン脱水素酵素由来の2 NADHを含む)。ピルビン脱水素酵素による処理後、2回のTCA回転とその進入により、2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 ATP相当 — 全好気的予算の of the whole aerobic budget (25 of 32), all from electron pairs 演習例 ₂ — 臨床的関連:閉塞したタービン。(架空の過量摂取シナリオ)
鮮赤色の静脈血を伴う虚脱:シアン化物が複合体IVに結合し、電子がO2に到達できず、 プロトンポンプ停止、勾配崩壊、ATP合成酵素停止(逆回転してATPを消費することすらあり得る)。この化学反応が complex IV, electrons cannot reach O₂, pumping stops, the gradient collapses and ATP synthase stops (it can even run backwards, spending ATP). The chemistry explains the 兆候を説明する:組織はO₂を抽出できず(静脈血は赤いまま)、ラクト酸 が増加する(解糖系のみが残る)。ブロックを迂回または 競合する治療法がある——メカニズムが先、解毒剤が後。
よくある間違い。 サイクルが「直接ATPを作る」と言う(実際には GTP+還元型キャリアを作ります;連鎖が勾配を作る)。CO₂を 「このサイクルのアセチル炭素から」数える(それらは後続のサイクルで排出される—— サイクルは炭素を混合する)。P/O 3と2にどの 規格を使用するか明記せずに用いる。
Summary. Acetyl → 3 NADH + 1 FADH₂ + 1 GTP per turn; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP per glucose (modern count, シャトル依存性);複合体IVが酸素の役割を果たす場所である。
グリコーゲンと糖新生
Why it matters. The brain burns ~120 g glucose a day and stores 貯蔵しない。食事の間隔中、体は異なる所有者を持つ2つのブドウ糖'>', 自身で保持して局所的に消費する。
The idea, with a picture. Glycogen: branched glucose polymer ($\alpha 1\to4$ chains, $\alpha 1\to6$ branch every ~8–12 residues). Liver stores ~100 g — EXPORTS glucose to blood; muscle stores ~400 g — 保持し、局所的に燃焼する。

数値を伴う定義。 グリコーゲンホスファリラーゼは $\alpha1\to4$ (リン酸解、ATP消費なし) を切断し、デブランチング酵素が $\alpha1\to6$ スタブを処理する。 糖新生 は、 グリコリシスの3つのゲートに逆らう上り坂 — 4 ATP + 2 GTPの消費を伴い
- グルコースあたり2 NADH(高エネルギーリン酸基6個、グリコリシスの正味 利益は 2 )。
由来(なぜ二つの貯蔵庫か)。 筋にはグルコース-6-ホスファターゼがない: そのグルコース-6-P は取り留められ、糖解を補給する — 輸出できない。 輸出できない。肝にはホスファターゼがある: グリコーゲン → グルコース-1-P → グルコース-6-P → 遊離グルコース → 血液。一つの酵素の 有無が臓器の役割を決定し、ホルモンがこれを制御する — ** glucagon** (肝のみ) が分解を誘導し、 インスリン が合成を誘導する。
** worked example 1 — 夜間の予算。** 肝グリコーゲン ~100 g ≈ 400 kcal;脳は約120 g/日 ≈ 480 kcal/日を必要とする。預金庫がカバーする roughly a day's brain use ✓ — after 12–24 h fasting, gluconeogenesis が引き継ぐ必要がある (筋からのアミノ酸、脂肪からのグリセロール、Cori回路によるラクト酸)。 コリー回路を介して)。
** worked example 2 — 臨床的関連:タッピングできないランナーの 銀行。**(架空)スプリント後の筋肉痙攣と暗い尿:筋 ホスホリラーゼ欠損(マカードルパターン)— グコゲンが蓄積されているが 利用できず、ATPが減少し、ミオグロビンが漏出し、期待される乳酸 上昇は全く到来しない。検査値そのものがメカニズムである:最大運動時の 乳酸欠如は、糖解路のゲートより前の欠陥を特定する。
** 一般的な間違い。** 2つのグリコーゲン貯蔵庫を1つとして扱う(筋 グリコーゲンは血液中のグルコースにはならない)。新生合成を "無料の逆糖解路"として数える(これには 6 の高エネルギーリン酸を要する)。 グルカゴン受容体を筋に配置する(存在しない)。
** まとめ。** 肝臓 ~100 g を輸出(ホスファターゼを有する)、筋 ~400 g を保持(欠く);ホスホリラーゼ+脱分岐酵素が分解し、シンテース+ 分岐酵素が構築する;グルカゴン/インスリンがシグナルを設定する;新生合成 は、グルコースあたり 4 ATP + 2 GTP + 2 NADH を要する。
リピッド代謝
** 重要性。** 脂肪は体の長期エネルギー倉庫であり、かつ 最大の交通問題である:水に不溶な脂質は、その機能不全が世界で最も 常见的な疾患となる輸送フリートが必要である。
** 概念と図示。** β-酸化 線粒体内でのβ: 各サイクルで脂肪酸-CoAから 2 Cを切断し、1 アセチル-CoA + 1 を生成する。 FADH₂ + 1 NADH。輸送:リポタンパク質 — チロミクロン (腸 → 組織)、VLDL (肝臓 → 組織)、LDL (コレステロールを 組織へ — 「悪玉」の運搬体)、HDL (コレステロールを肝臓へ戻す — 「善玉」) )。

導出(パルミト酸の個数)。 パルミト酸 (C16):$\beta$- 酸化には $(16/2) - 1 = 7$ サイクルが必要 → 8 アセチルCoA + 7 FADH₂ + 7 NADH。収量:各アセチルはサイクルを通じて 10 相当分となる ($3\times2.5 + 1.5 + 1$)、したがって 8 のアセチルで 80 が得られ、7 の FADH₂ は $7\times1.5 = 10.5$ を、7 の NADH は $7\times2.5 = 17.5$ を提供;これらから2 を for activation: 106 ATP per palmitate ✓ — against 30–32 per glucose: fat pays several-fold per carbon, because it is almost fully 還元されているためである。
** worked example 1 — ケトン体、脳のディーゼル燃料。** 持続的空腹時: β-酸化によるアセチルCoAの生成がTCA回路の処理能力を上回り(OAAは 糖新生へ向かう)、肝臓はそれらを縮合させて ケトン体 を 生成する(アセト酢酸、β-ヒドロキシブ酪酸)并向外输出 — 水溶性で、 crossing to the brain, worth ~21.5 ATP per β-hydroxybutyrate. By day 3 ketones supply about a third of the brain's energy, and after several weeks up to two-thirds, sparing muscle protein ✓.
** worked example 2 — 臨床的関連:点火装置のないエンジン。** (架空の乳児)空腹時低ケトン性低血糖症:アシルCoA 脱水素酵素が欠損し、β酸化が停止し、ケトン体は生成されず かつ糖新生を駆動するATPも存在しない——この二重の機能不全が両方の 検査所見を説明する。診断的特徴(低血糖と低ケトン体を併発) は、血液スポンジから読み取れるメカニズムである。
** 一般的な間違い。** ATP計算において活性化コスト(−2当量)を見落とすこと。 脳が長鎖脂肪酸を燃焼できると想定すること(脳は血液脳関壁を通過できないため、ケトン体が代替燃料となる)。 脂肪酸をほとんど酸化しない — ケトン体はその代替燃料となる)。 LDLを「コレステロール」と呼ぶ(実際は運搬粒子である)。
** まとめ。** β酸化:C16 → 8 アセチルCoA + 7×(FADH₂+NADH) → 106 ATP正味産生;キールミクロン/VLDLが輸出し、LDLが運搬し、HDLが還流する;空腹時は 肝臓がケトン体の輸出器官となる。
窒素代謝と尿素回路
** なぜ重要か。** 窒素は貯蔵できない:今日必要とされないすべてのアミノ酸は 今日中に脱氨基され、放出されたアンモニアはマイクロモル濃度で 神経毒性を示す。排泄は任意ではない——それは 2つの区画にわたる5段階のコンベヤーベルトである。
** 概念と図示。** アミノ基はグルタミン酸へ集約される (トランスアミン化: アミノ酸 + α-ケトグルタル酸 ⇌ クロモ酸 + グルタミン酸)、 次に、肝臓ミトコンドリアで酸化脱アミノ反応によりNH₃が遊離する。この 尿素回路はミトコンドリアと細胞質の両方で行われる: NH₃ + CO₂ → カルバモイルリン酸 → シトルリン → (細胞質)アルギニノ- スクシネート → アルギニン → 尿素 + 再生されたオルニチン。

数字付き定義。 尿素:分子あたりNが2個(NH₃由来が1つ、 アスパラギン酸由来のものを含む)、尿素1分子あたりのコストは 3 ATP (4 高エネルギー結合)。 正常な血中アンモニア濃度は約~10–35 µmol/L — 脳に 尿素回路がないため、非常に厳密に維持される。
その理由(なぜ肝臓、なぜその場所か)。 アンモニアの解毒作用 全身循環の上流に位置しなければならない:腸からの門脈血液は 肝臓に直接流入し、最初の通過時にアミノ酸と アンモニアを抽出する。脳や筋肉はこの回路のコストを支えられず、窒素をグルタミン(アンモニア輸送車)として アラニン(炭素・窒素輸送車)として肝臓へ 輸出し、処理させる。場所こそが安全システムである。 プロセス。場所こそが安全システムである。
** worked example 1 — 一日の帳簿。** 一般的な食事では、 約70–100 g タンパク質/日 ≈ 11–16 g N が循環し、ほぼすべて尿素として排泄される (25–35 g/日)。照合確認:各尿素分子は 2 の窒素(28 g の 60 g)を含む 分子 = 47 % 質量): 30 g ウレア × 0.47 ≈ 14 g N ✓ — 尿 食事に一致する。
** worked example 2 — 臨床的関連: 閉塞したコンベヤー** 。 (架空の 新生児) 初回授乳後、眠気から昏睡へ、極めて高いアンモニア値、 尿中のオロト酸: オルニチンカルバミルトランスフェラーゼ欠損症 — これは サイクルが2ステップで詰まり、カルバモイルリン酸がピリミジン 合成に漏れ出す(よってオロテとなる)。メカニズムベースの管理は ブロックを先取りし、窒素摂取を制限し、アンモニアを除去し、代替経路を供給する — バイオchemistryがプロトコルを記述する。
** 一般的な間違い。** "ウレアはアンモニアを除去する"と書く(実際には2つの 窒素: NH₃ とアスパラギン酸のアミノ基)去除する。ウレアサイクル 酵素が脳にあると期待する(肝臓のみ;それゆえアンモニアが脳に到達する)。 ATPコストを忘れる(窒素排泄は高価である: 4結合)。
** 要約。** 転アミノ化反応によりNはグルタミン酸へ集約され、肝臓のサイクル (2コンパートメント、5酵素)はウレアを3 ATPごとに合成し、2 Nを排出する; グルタミンおよびアラニンはタクシーであり、オロテ伴う高アンモニア血症は OTC欠損を示唆する。
代謝の統合:摂食中、空腹時、および糖尿病
** 重要性。** 代謝はスイッチを持つ単一システムである。インスリンおよび グルカゴンはレバー、臓器はギアであり、糖尿病はその スイッチの切り替え — 医学における最も教訓に富む統合である。
概念、図付き。 摂食状態(インスリン高濃度): ブドウ糖を全細胞へ、グリコーゲン充填、余分な炭素は脂肪へ。 空腹状態(グルカゴン高濃度): 肝グリコゲノリシス(数時間後)→ 糖新生(数日)→ケトジェネシス(脳が適応)。一つの燃料帳簿、 三つの時間帯 regime。

数値付き定義。 脳 ~120 g/日のブドウ糖。肝臓グリコーゲン ~100 g (~a day). Ketones cover about a third of brain energy by day 3 of a fast, and up to two-thirds after several weeks. Diagnostic anchor: HbA1c ≥ 6.5 % indicates diabetes — ヘモグロビンの糖基化は赤血球の ~120 日間の寿命を通じて蓄積し、 テープレコーダーのようにブドウ糖を統合する。
導出(スイッチ論理)。 一つの変数 — 栄養の供給ありなし? — 全臓器の矢印を一貫して設定しなければならない。同じ酵素に対して 相反する作用を持つホルモン対(PFK-2、グリコーゲン合成酵素、 これらをリン酸化します;インスリンはcAMPを低下させ(ホスフォジエステラーゼ作動)、 ホスファターゼを活性化するため、同じ酵素は脱リン酸化されます。優れている点は、ONE(単一)の ホスファターゼを活性化するため、同じ酵素からリン酸基が除去される。美しさは、ONE(1つ)の シグナルで、7つではなく、4 臓器が互いに矛盾した働きをするのを防ぐ — 糖尿病はその矛盾した働きの代償を見せる。
** worked example 1 — 空腹化のタイムライン。** 時間0(食事終了後): 血糖が低下。時間0–4:吸収された燃料が消費され、インスリンが減少。時間 4–12:肝臓グリコゲンが枯渇。時間12–24:蓄積が尽き、糖新生 が加速(筋肉アミノ酸、グリセロール、ラクト酸)。日数1–3:タンパク質 sparing begins as ketones rise. Day 3: about a third of brain energy 用語は医療用語の国家基準に従っています。 転換は前段階のメカニズムであり、タイミングが設定されている。
** worked example 2 — 臨床的関連: jamsmed スイッチ、双方向。** (架空の症例)タイプ1 の特徴:インスリンがないため、高血糖にもかかわらず 細胞は「空腹」状態と認識—脂肪が放出され、ケトン体が溢れ出(アシドーシス、 肺による代償としてのクスマウル呼吸)、筋肉が分解され、尿から 糖分と水分が失われる(浸透性利尿、多飲)。すべての症状は 4つの臓器によって読み取られる単一のスイッチである。タイプ2 の特徴:インスリンはあるが、 抵抗する — 同じ帳簿だが、より穏やかな矢印、数時間ではなく数年単位。
** 一般的な間違い。** インスリンを「血糖を下げるもの」としてのみ解釈する(それは ALL fuels の方向性を決定する)。脳のグルコース必要量を交渉可能とみなす (ケトン体は部分的に代替するが、数日かかる)。HbA1c(3ヶ月の 平均値)とグルコース測定値(数分)を混同する。
** まとめ。** インスリン/ glucagon = 全臓器に対する一つのレバー;摂食 → 貯蔵, 空腹 → 糖原分解 → 糖新生 → ケトン生成(約24時間 / 3日周期で) クロックで;HbA1c ≥ 6.5 % がテープを統合し、糖尿病性ケトアシドーシスは 高血糖下進行空腹代謝。