מה הקורס הזה הוא, וכיצד להשתמש בו
זהו הקורס השני באוניברסיטה ברפואה: רפואה ביוכימיה. MED01 בנה את התא; קורס זה ממלא אותו — המולקולות, האנזימים והזרימות של דלק שמחזיקות אדם פעיל, וכימיה שהרפואה הקלינית קוראת כל יום.
גבול היקף, מצוין פעם אחת: קורס לימודים, לא תואר רפואי; כל המקרה למטה הוא בדיוני ואף דבר כאן אינו מעניק רישוי או מדריך לטיפול.
- יחידות 2.1–2.2 הן המנגנון: חלבונים וקינטיקה אנזימטית.
- יחידות 2.3–2.4 הן אנרגיה: גליקוליזה ומנוע החמצון.
- יחידות 2.5–2.7 הן אחסון ותנועה: גליקוגן, שומנים, חנקן.
- יחידה 2.8 משלבת: הזנה, רעב וסוכרת כספר חשבון אחד.
הרגל הרפואי: מנגנון לפני עובדה — כל קבוע אנזימי, ספירת ATP וזרימת דלק למטה הם דברים שתחשבו מחדש, וכל קשר קליני מיימן את השלב השבור.
חלבונים ומבנה חלבונים
למה זה חשוב. אנזימים, נשיאים, נגד-גוף, קולטים — כמעט כל מה שהתא עושה, חלבון עושה זאת. מבנה אינו עיטור: רמה אחת בונה על הקודמת, וכל רמה היא מקום שבו מוטציה יכולה לשבור.
הרעיון, עם תמונה. ארבע רמות: ראשונית (ה) amino-acid sequence, read N→C), secondary ($\alpha$-helix, $\beta$-sheet, held by backbone H-bonds), tertiary (the full 3D, ליבת הידרופובית), רביעי (הרכבת תת-יחידות).

הגדרות עם מספרים. 20 חומצות אמינו; קשר פפטידי ~1.33 אנסטרום. החלבון חלבון הייחוס הוא הימוגלובין (Hb): 4 תת-יחידות ($\alpha_{2}\beta_{2}$), 4 קבוצות הים, 64.5 קילוארדם, כל אחת O₂ — עד 4 O₂ לכל מולקולה.
המסקר (קואופרטיות). מיגלובין קושר O₂ בצורה פשוטה המוגלובין קושר בעקומה סיגמוידית S כי כל O₂ הקשור משנה את התת-יחידות מהמצב בעל האפיניות הנמוכה T ל מצב בעל קשריות גבוהה R — הקישור עוזר לקישור: קואופרטיביות. המקדם של היל טעינה מלאה בריאות ($n_H \approx 2.8$ mmHg), פינוי ~4 % התוצאה: טעינה מלאה בריאות ($pO_{2} \approx 100$ mmHg), כ-25 % שחרור ברקמות רגועות ($pO_{2} \approx 40$ mmHg) ועל 60 % ב שריר פעיל ($\approx 20$ mmHg), מכיוון שהחלק התלול באמצע של הסיגמואיד נמצא בדיוק בטווח זה.
דוגמה מופרשת 1 — החישוב האריתמטי. הדם מכיל מול/dL = 15 מיקרו-מול/dL ×64.5 אתרים = 64 מיקרו-מול O500/dL ≈ $15/64\,500 = 2.33\times10^{-4}$ מ mol/dL = 233 µmol/dL ×4 אתרים = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL למילימול) — הערך התאורטי של 1.39 mL O₂ לכל גרם Hb. הערך הנמדד הוא 1.34 mL/g, 20.1 mL O₂/dL ✓, מעט נמוך יותר מכיוון חלק מההימוגלובין נמצא בצורות שאינן מסוגלות לשאת O₂.
דוגמה מופרשת 2 — קישור קליני: חרוז אחד טעון. (מטופל חולה) HbS: החלפת Glu→Val במיקום 6 בשרשרת β ממירה מטען טעינים הידרופובי; במצב T דאוקסי הוא מתחבר לכיס על שכנו, ומפולימריזציה את ה-Hb והכרת את התא. מבנה ראשוני, חרוז אחד, השתנתה התנהגות קוואטרנרית — וחסם זרמי למה זה חשוב. כמעט כל אבחון בפנל דם הוא פעילות אנזימית; כמעט כל תרופה היא מעכבת אנזימי. קינטיקה היא האופן שבו הביוכימיה הופכת למדידה מוחשית — והאופן שבו תקרא את תוצאות המעבדה. השלכות קוואטרנריות.
שגיאות נפוצות. קריאת "דינאורציה" כשבירת קשרים פפטידים (היא מקפל את הקיפול; הרצף שורד). ייחוס לכל המוטציות רמת חומרה זהה (שינויים משמריים על הפני שטח עשויים להיות שקטים; ליבה או אתרים פעילים אינם). בשכחה של ליגנדים של Hb (H⁺, CO₂, 2,3-BPG כולם מזיזים את העקומה — הפיזיולוגיה נסמכת על הזזות אלו).
Summary. Sequence → fold → 3D → assembly; Hb is the reference טטרמר עם קישור סייגמואידי וקואופרטיבי ($n_H \approx 2.8$); אחת חומצה גלטמית (Glu6Val) יכולה לשנות התנהגות טטרארית.
אנזימים וקינטיקה אנזימטית
מדוע זה חשוב. כמעט כל אבחון במדף בדיקות דם הוא פעילות אנזימית; כמעט כל תרופה היא מעכב אנזימי. הקינטיקה היא הדרך שבה הביוכמיה הופכת למדידה כמותית — וכיצד תקרא את תוצאות המעבדה. פעילות אנזימטית; כמעט כל תרופה היא מעכבת אנזימטי. קינטקה היא כיצד ביוכימיה הופכת לכמות מדידה – וכיצד תצטרכו לקרוא את הבדיקות במעבדה.
הרעיון, עם תמונה. אנזימה מורידה את מחסום ההפעלה ולא משתנה באמצעות השימוש. עקומת הקצב היא מיכאליס-מנטן: $v = \frac{V_{max}[S]}{K_m + [S]}$, כאשר $K_m$ הוא ה ריכוז הסובסטRATE במהירות חצי מקסימלית.

הגזירה (למה יש רוויה). E + S ⇌ ES → E + P: בריכוז נמוך $[S]$, כמעט כל E חופשי, לכן $v \approx (V_{max}/K_m)\cdot[S]$ — דרגה ראשונה ביחס ל-S. בריכוז גבוה $[S]$, כל E נמצא ב-ES: $v$ שואף ל$V_{max}$ — דרגה אפס. הקו ההפוך הכפול (לינווויר-בורק) $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ ממיר את ההיפרבולה ל קו ישר: חיתוך ציר y $1/V_{max}$, חיתוך ציר x $-1/K_m$.
דוגמה פותרת 1 — קריאת נתונים. אנזמה נותנת $v = 33$ µmol/min בריכוז $[S] = 1$ mM ו-$v = 60$ בריכוז $[S] = 4$ mM. כתוב $v = V[S]/(K+[S])$ פעמיים וחלק: $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓. בדוק את נקודת החצי: ב $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
דוגמה פותרת 2 — קישור קליני: המחסם התחרותי. (חולה בדמיוני על מעכב מסוג סטטינים) תרופה שמיימת המצטבר ויורד לתוך האתר הפעיל (דיכוי תחרותי ): המראה $K_m$ עולה, $V_{max}$ לא משתנה — ניתן להתגבר על כך על ידי הוספת יותר סובסטרט, וקווי L-B נחתך על ציר ה-y. קישור לא תחרותי במקום אחר מקטין $V_{max}$ ומשאיר את $K_m$ ללא שינוי (הקווים נפגשים על ציר ה-x). קריאה אילו קו זז היא המנגנון.
שגיאות נפוצות. כינוי $K_m$ כקשר-אפיניה (זו ריכוז; $K_m$ נמוך משמעותו למעשה קשר-אפיניה גבוה). התאמת שני נקודות בראש מבלי לבדוק נקודה שלישית. ציפיה שמעכבים ישנו כמות האנזים (אינדוקציה עושה זאת; מעכבים משנים פעילות).
סיכום. $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ בחצי $V_{max}$; תחרותי: $K_m$↑ $V_{max}$ זהה; לא תחרותי: $V_{max}$↓ $K_m$ זהה; חיתוכי L-B מזהים איזה.
ביואנרגטיקה וגלוקוליזה
למה זה חשוב. תאים משלמים על הכל באט המטבע הוא מדויק: תגובות מצומדות מתקדמות רק כלפי מטה בהפרש אנרגיה חופשית. גלוקוליזה היא הדרך הישנה והשמורה ביותר לייצור ATP — ו העוגן המטבולי של כל יחידה מאוחרת יותר.
הרעיון, עם תמונה. קישור: תגובה לא רצויה מתרחשת רק כאשר היא מחוברת לתגובה רצויה ($\Delta G$ נוסף). גליקוליזה מפצל גלוקוז אחד (6 C) לשתי פירובט (3 C): שלב השקעה (2 ATP הושקע), שלב תשלום (4 ATP + 2 NADH נוצרו), סך 2 ATP + 2 NADH ✓ — ללא תלות בחמצן.

הגדרות מספריות. שלושת השלבים האי-חוזרים בעיקר ($\Delta G^{\circ\prime}$ שלילי מאוד): הריקינאז (−16.7 kJ/mol), PFK-1 (−14.2, השלב הנכנס והשלב המרכזי בקרה), פירובט קינאז (−31.4). ללא O₂, NAD⁺ מוחזר על ידי דהידרוגנאז לקטט: פירובט + NADH → לקטט (הפרעה).
הפקת המשמעות (מדוע PFK-1 הוא השער). תיאוריית בקרה אומרת: יש לשעבר את השלב הראשון הנכנס והאי-חוזר. הריקינאז נכנס מראש (סוכרים אחרים משתמשים בו); פירובט קינאז מאודי מדי (ההשקעה ב כבר בוצעה). PFK-1 הוא השלב הראשון הייחודי לגליקוליזה — ולכן AMP ו-ADP מפעילים אותו; ATP וציטרט מדכאים אותו; פרוקטוז-2,6- ביספוספט ( אותות אינסולין) מפעיל אותו בחוזקה. אנזים אחד רואה את מצב האנרגיה הכללי של התא.
דוגמה עבודה 1 — ספר ה-ATP. לכל גלוקוז: −2 (השקעה) +4 (תשלום) = ניקוד 2 ATP נטו; פלוס 2 NADH (ציטוסולי — שווה 5 ATP דרך מלאת טרום או 3 דרך גליצרול פוספט, יחידה 2.4). אנאירובית ה-2 NADH צורכים את עצמם על ידי הפחתה מחודשת של פירובט לקטט: התפוקה האנאירובית היא בדיוק 2 ATP ✓.
דוגמה מודגמת 2 — קישור קליני: הדלת שלא נפתחת. (מטופל בדיוני) התכווצויות שרירים תוך שניות של ריצה, ללא עלייה ב חומצה לקטית בדם: פוספורילאזת השריר פעילה (גליקוגן מתפרק) אך PFK-1 חסר – סוכר פוספטים מצטברים לפני השער, התשואה payoff never comes, ATP falls and myoglobin spills. One gate, one exertional syndrome: the regulated step הוא מוקד המחלה.
שגיאות נפוצות. ספירת ATP כולל כאשר נדרש נטו. מיקום הויסות בשלבים הפיכיים (הויסות נמצאת בשלבים בלתי-פיכיים, דלתות). שוכחים שהתחדשות NAD⁺ אנאerובית היא הסיבה לכך שחומצה לקטית נוצרת (ולא מוצר פסולת – אלא הכרח אדוקסידיבי).
סיכום. גלוקוז → 2 פיביווט, ATP נטו 2 + 2 NADH, שלושה דלתות בלתי-פיכתיות עם PFK-1 מחייבת; AMP/ADP על, ATP/ציטרט על; חומצה לקטית קונה NAD⁺ כאשר O₂ נעדר.
מחזור TCA וזיהום חמצני
למה זה חשוב. חמצן קיים למשימה אחת בגוף: לקבל אלקטרונים בסוף שרשרת ההובלה. מחזור TCA ממיר יחידות אצטיל לאלקטרונים אלו, והATP סינתאזה ממירה את יחידות אצטיל לתוך אלקטרונים אלו, והסינתאז של ATP מסדר את ירידה ל-~90% מאתרה של הגוף. יחידה זו היא מקום בו מתרחש המטבוליזם האנרגטי הרעיון, עם תמונה. מחזור TCA (קרבס):
הרעיון, עם איור. מחזור TCA (קריבס): אצetyl-CoA (2 C) + אוקסאלואצטט (4 C) → ציטרט (6 C) → שתי דקארבוקסילציות FADH3, 1 GTP**. שרשרת הובלת האלקטרונים (ממברנה פנימית FADH₂, 1 GTP**. שרשרת הובלת אלקטרונים (ממברנה פנימית הממברנה המיטוכונדרית): הקומפלקסים I, III, IV מזרמים H⁺ החוצה; החזרה דורך ATP סינתאזה ATP מייצר ATP.
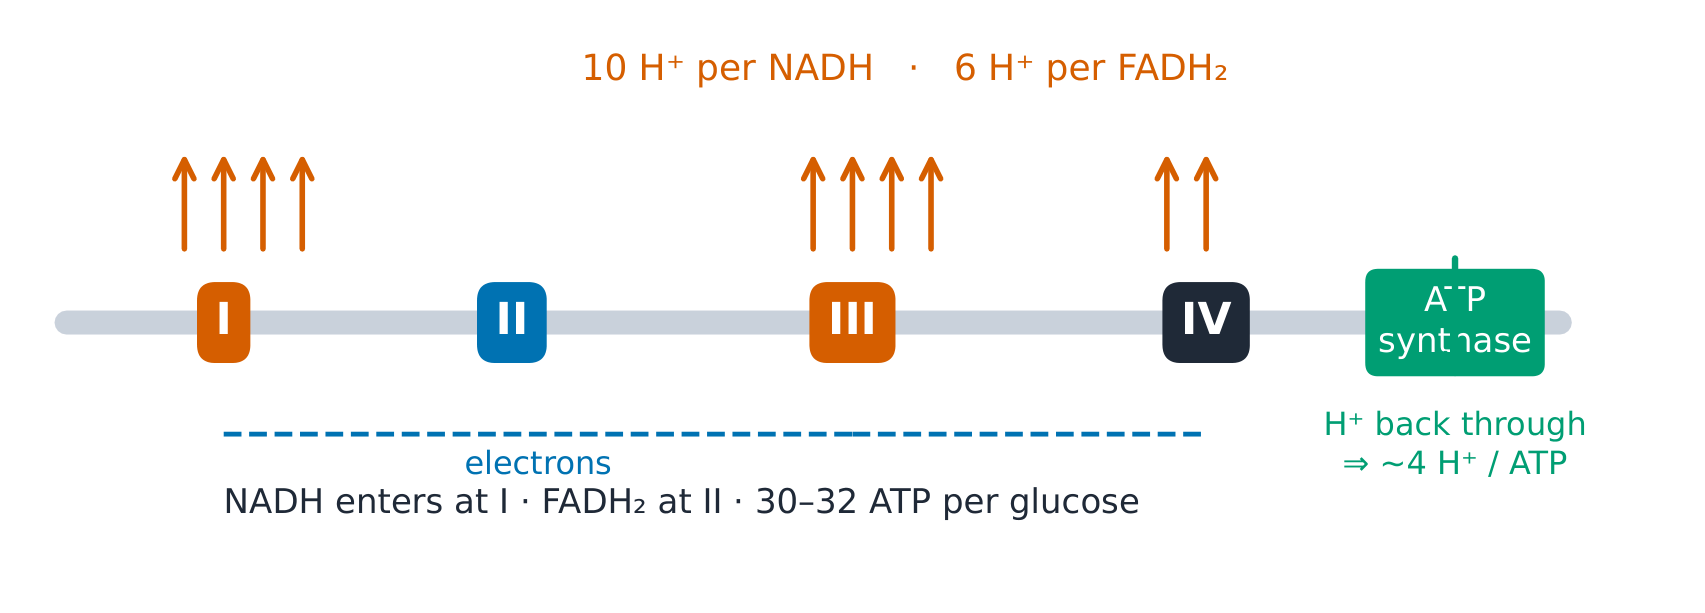 הגזירה (הספירה המודרנית ל-ATP). כל NADH: קומפלקסים I+III+IV
המסקר (הספירה המודרנית ל-ATP). לכל NADH: קומפלקסים I+III+IV פומפ 4+4+2 = 10 H⁺; לפי FADH₂ (כניסה ב-II): III+IV = 6 H⁺. ATP סינתאז צריך ~3 H⁺/ATP נוסף 1 H⁺ ליצוא Pi: 4 H⁺/ATP. לכן NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — ולפי המעבר של מלאט) + 2×2 (NADH פירובט דהידרוגנאזה) + 2.5 GTP + NADH, מנגנון המלטט) + 2×2.5 (NADH פירובט דהידרוגנאז) + 2 GTP + 6×2.5 (TCA NADH) + 2×1.5 = 32 ATP עם מנגנון המלטט, 30 עם גליצרול פוספט (ה"36–38" הישן השתמש ב-P/O מעוגל של 3 ו-2).
דוגמה מופרשת 1 — חשבון אצטיל. גלוקוז אחד → 2 פירובט → 2 אצטיל-CoA (2 NADH מפירובט דהידרוגנאז). עם פירובט דהידרוגנאז, שתי מחזורי TCA כניסה יוצרים 2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 equivalent-ATP — שלושה רבעים מתקציב האירובי הכולל (25 מתוך 32), כולם מהזוגות אלקטרוניים מועמד לחיבור ל-O₂.
דוגמה מופרשת 2 — קישור קליני: הטורבינה החסומה. (סיטואציה בדיונית של מינון יתר) קריסה עם דם ורידי אדום בהיר: ציאניד נקשר למורכב IV, האלקטרונים אינם מגיעים ל-O₂, המשאבה עוצרת, הגרדינט קורסים וATP סינתאז עוצרת (ייתכן שהיא תפעל הפוכה, מבזבזת ATP). הכימיה מסבירה את הסימנים: הרקמות אינן יכולות להפיק O₂ (הדם הורידי נשאר אדום), לקטט עולה בחוד (נותרת רק גליקוליזה). קיימים טיפולים למעקף או להחליף את החסימה — המנגנון תחילה, נגד-רעל לאחר מכן.
טעויות נפוצות. אמירה שהמחזור "מייצר ATP" ישירות (הוא מייצר GTP + נושאי חשמל מופחתים; השרשרת מייצרת את הגרדינט). ספירת CO₂ כ מ"פחמן האציל של סיב זה" (הם יוצאים בסיב מאוחר יותר — ה מחזור מערבב את הפחמנים שלו). שימוש ב-P/O 3 ו2 ללא ציון איזה קונבנציה.
סיכום. אצטיל → 3 NADH + 1 FADH₂ + 1 GTP לכל סיבוב; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP לגלוקוז (ספירה מודרנית, תלויה במעביר); מורכב IV הוא המקום שבו חמצן זוכה לתגמולו.
גליקוגן וגלוקאוניה
למה זה חשוב. המוח שורף ~120 גרם גלוקוז ביום ואינו מאחסן כלום. בין ארוחות הגוף חי על שני בנקי גלוקוז בעלי בעלים שונים — ובמצב רעב הוא חייב ליצור גלוקוז מאפס. בעלי הבית — ובמהלך רעב היא חייבת ליצור גלוקוז מאפס.
הרעיון, עם תמונה. גליקוגן: גלוקוז ענפי polymer ($\alpha 1\to4$ chains, $\alpha 1\to6$ branch every ~8–12 שאריות). הכבד מאחסן ~100 גרם — מייצא גלוקוז לדם; השריר מאחסן ~400 גרם — שומר עליו, ושרף אותו מקומית.

הגדרות עם מספרים. פוספורילאז גליקוגן חותך $\alpha1\to4$ (phosphorolysis, no ATP spent); debranching enzyme טופל בשאריות ה$\alpha1\to6$. גלוקונאוגנז הופך את הגליקוליזה למעלה סביב שלושת השערים שלה — על בזבוז של 4 ATP + 2 GTP
- 2 NADH לכל גלוקוז (6 פוספטים באנרגיה גבוהה, לעומת הרווח הנקי של 2 בגליקוליזה).
המסקר (למה שני בנקים). השריר חסר גלוקוז-6-פוספטאז: הגלוקוז-6-P שלו נכלא ומזין את הגליקוליזה — לא ניתן ליצא מה שלא ניתן לפשוט. הכבד יש לו את הפוספטאז: גליקוגן → גלוקוז-1-P → גלוקוז-6-P → גלוקוז חופשי → דם. אנזים אחד נוכחות או היעדרו קובעים את תפקיד האיבר; הורמונים מכוונים אותו — גלוקאגון (רק בכבד) מגרה פירוק, אינסולין מגרה סינתזה.
דוגמה פותרת 1 – תקציב לילי. גליקוגן כבד ~100 ג' ≈ 400 קק"ג; המוח זקוק ל-~120 גרם/יום ≈ 480 קק"ג/יום. הבנק מכסה כאורך יום שימוש מוחי ✓ — לאחר 12–24 שעות רעב, גלוקונאוגנזיס חייב לקחת חלק (חומצות אמינו מהשרירים, גליצרול מהשומן, לקטט דרך מחזור קורי).
דוגמה פתורה 2 — קישור קליני: הרץ שאינו יכול להפעיל את הבנק. (דמיוני) התכווצויות וכחלית כהה אחרי ריצה ספרנט: פיפוספורילאז שרירית חסר (תבנית מקארדל) — גליקוגן מאוגר אך לא נגיש, ATP יורד, מיאוגלובין דולף החוצה, ועליית הלקטט הצפויה לעולם אינה מתרחשת. המעבדה היא המנגנון: העדר לקטט במאמץ מקסימלי ממוקם את הפסקה לפני שער הגליקוליזה.
שגיאות נפוצות. טיפול בשני בנקי הגליקוגן כאחד (גליקוגן שרירי מעולם אינו הופך לגלוקוז בדם). חישוב גלוקונאוגנזיס כ- "גליקוליזה הפוכה בחינם" (היא עולה על 6 פוספטים אנרגטיים גבוהים). הנחת רसेפטורים לגלוקגון על שרירים (אינם קיימים).
סיכום. הכבד ~100 גרם משחרר (יש לו פוספטאז); שריר ~400 גרם שומר (חסר בו); פיפוספורילאז + דברנצ'ר פרקים, סינתאז + אנזים ענף בונה; גלוקגון/אינסולין קובעים את הסימן; גלוקונאוגנזיס עולה על 4 ATP + 2 GTP + 2 NADH לכל גלוקוז.
מטבוליזם ליפידים
מדוע זה חשוב. שומן הוא האחסון האנרגטי לטווח ארוך של הגוף — וזה בעיית התנועה הכבדה ביותר שלו: חסר-מסיס במים, שומנים זקוקים ל צוות הובלה שמכשלותיו הן מחלתה הנפוצה בעולם.
הרעיון, עם תמונה. β-אוקסידציה ב-mitochondria: כל מחזור חותך 2 C מה-acyl-CoA של חומצה שומנית, ומייצר 1 acetyl-CoA + 1 FADH₂ + 1 NADH. הובלה: ליפופרוטאינים — כילומיקרונים (מעיים → רקמות), VLDL (כבד → רקמות), LDL (כולסטרול ל- רקמות – המוביל ה"רע"), HDL (כולסטרול חזרה לכבד – ה- "טוב").

הגזירה (ספירת הפלמיטט). פלמיטט (C16): $\beta$- אוקסידציה דורשת $(16/2) - 1 = 7$ מחזורים → 8 acetyl-CoA + 7 FADH₂ + 7 NADH. תשואה: כל אצטיל שווה 10 שקולים דרך המחזור ($3\times2.5 + 1.5 + 1$), ולכן 8 acetyl נותן 80; ה-7 FADH₂ נותנים $7\times1.5 = 10.5$ וה-7 NADH נותנים $7\times2.5 = 17.5$; פחות 2 לפעילות: 106 ATP לפלמיטט ✓ – לעומת 30–32 ל- גלוקוז: שומן משתלם פי כמה לכל פחמן, מכיוון שהוא כמעט לחלוטין מופחת.
דוגמה פותרת 1 – קטונים, הדלק של המוח. רעב מתמשך: acetyl-CoA מ-β-אוקסידציה עולה על קצב המחזור (OAA מוטה ל גלוקונואוגנזיס), ולכן הכבד מאחד אותו לגופרי קטון (אצטואצטט, β-הידרוקסיבוטירט) ומייצא אותם — מומסים במים, מעבר למוח, עולה ~21.5 ATP לכל מולקולת β-hydroxybutyrate. ביום 3 קטונים מספקים כשליש מאנרגיית המוח, ואחרי מספר שבועות עד שני שלישים, תוך שמירה על חלבון שרירים ✓.
דוגמה מפורשת 2 — קישור קליני: המנוע ללא מצת. (תינוק בדיוני) היפוקולנסיה היפו-קטונית במצב רעב: אנזים דהידרוגנאזת אציל-CoA חסר, β-אוקסידציה נעצרת, אין ייצור קטונים וְאין ATP להפעיל גלוקונואוגנזיס — הכשל הכפול מסביר BOTH הממצאים המעבדתיים. החתימה האבחנתית (גלוקוז נמוך WITH קטונים נמוכים) היא המנגנון הקריאה מדגימת דם על נייר.
שגיאות נפוצות. לשכוח את עלות ההפעלה (−2 equivalent) בספירת ATP. לצפות שהמוח ישרוף חומצות שומן ארוכות-שרשרת (זה מחמצן מעט מאוד חומצות שומן — הקטונים הם החלפתם). לקרוא ל-LDL "כולסטרול" (זהו חלקיק ה-NASCHER).
סיכום. β-אוקסידציה: C16 → 8 אצטיל-CoA + 7×(FADH₂+NADH) → 106 ATP נטו; כיילומיקרון/VLDL יוצאים, LDL מובילים, HDL חוזרים; רעב הופך את הכבד למייצא קטונים.
מטבוליזם של חנקן וצמיסת הבריקה
למה זה חשוב. חנקן לא ניתן לאחסון: כל חומצה אמינית שלא נדרשת היום חובה להיות דהאמינציה היום, והאמוניה השחררת היא נוירוטוקסי בקונצנטרציות מיקרו-מולריות. הפקת פסולת אינה אופציונלית — היא is a five-step conveyor across two compartments.
הרעיון, עם תמונה. קבוצות האמינו זורמות לגלוטמט (transamination: חומצה אמינונית + α-ketoglutarate ⇌ חומצה קטונית + גלוטמט), כאשר דהאמינציה אוקסידטיבה משחררת NH₃ במיטוכונדריה הכבד. התהליך מחזור הדיאוקסיד מתרחש במיטוכונדריה ובציטוסול: NH₃ + CO₂ → פוספאט קרבמוייל → ציטרולין → (ציטוסול) ארגינינו-סוקצינטט → ארגינין → דיאוקסיד + אורניטין שמחודש. סוקצינט → ארגינין → אוראה + אורניתינה מחדשת.

אחד מארגינין), עלות 2 ATP (₃ קשרים אנרגטיים גבוהים) לכל מולקולת דיאוקסיד. אחד מגלוטמט), עלות 3 ATP (4 קשרים אנרגטיים) לאוראה. רמת האמוניה בתוך הדם היא רק ~10–35 µmol/L — רמה נמוכה מאוד, כי המוח המסקר (למה הכבד, ולמה שם). רעילות האמוניה
חייבת להתרחש לפני כניסתה למחזור הדם הכללי: הדם הפורי מהמעיים נשפך ישירות לכבד, שהוא סופג חומצות אמינו ואמוניה בשיטה הראשונה. המוח והשרירים לא יכולים לשאת בעלות המחזור — הם מייצאים חנקן בצורת גלוטמין (מכוון האמוניה) ועל-אלנין (מכוון הפחמן והחנקן) כדי לכבד עלות — הם מייצאים חנקן כ-גלוטמין (מכוון האמוניה) וגלנין (מכוון הפחמן והחנקן) לכבד כדי תהליך. המיקום הוא מערכת הבטיחות.
דוגמה מוצגת 1 — הספר היומי. תזונה רגילה מתחלפת ~70–100 גרם חלבון/יום ≈ 11–16 גרם חנקן; משחרר בעיקר כאוראה (25–35 גרם/יום). בדיקת התאמה: כל אוראה מכילה 2 חנקן (28 גרם מ-60 גרם מולקולה = 47 % חנקן במסה): 30 גרם אוראה × 0.47 ≈ 14 גרם חנקן ✓ — השתן תואם את התזונה.
דוגמה מוצגת 2 — קשר קליני: ההובלה החסומה. (תינוק דמיוני) עייפות ולאחר מכן קומה לאחר הארוחות הראשונות, רמות אמोनिया גבוהות חומצה אורוטית בשתן: חוסר באנזים אורניטין טראנסקרבמיליז — המחזור מתעצר בשלב 2, פוספאט קרבמוייל נשפך לסינתזת פירימידינים (ולכן האורוטה). הטיפול על בסיס המנגנון עוקב אחרי החסימה: הגבלת צריכת חנקן, ספיחת אמוניה, הזנת דרכים חלופיות — הביוכמיה כותבת את הפרוטוקול. שגיאות נפוצות. כתיבה "האוראה מסירה אמוניה" (היא מסירה שני
טעויות נפוצות. כתיבה "אוראה מסירת אמוניה" (היא מסיירת שני חנקנים: NH₃ וקבוצת האמינו של הגלוטמט). צפייה בסדרת אוראה שכחתי את העלות באט שכחת את עלות ה-ATP (פיקוח על חנקן יקר: 4 קשרים).
סיכום. Transamination מכוונת N לגלוטמט; סדרת הכבד (2 תאים, 5 אנזימים) בונים אוראה בעלות של 3 ATP ומוציאים 2 N; גלוטמין וגלנין הם המכוניות; היפראמונימיה עם אורוסטט מפנה ל-OCT.
אינטגרציה של מטבוליזם: מצב תאוששת, רעב וסוכרת
למה זה חשוב. המטבוליזם הוא מערכת אחת עם מתג. אינסולין ו- גלוקגון הוא המנוף, האיברים הם הגלגלים, והסוכרת היא ה התקוע — האינטגרציה המדריכה ביותר ברפואה.
הרעיון, עם תמונה. מצב הזנה (אינסולין גבוה): גלוקוז לכל התאים, מילוי גליקוגן, פחמן עודף לשומן. מצב רעב (גלוקגון גבוה): גליקוגנוליזה בכבד (שעות) → גלוקונוגנזיס (ימים) → קטוגנזיס (המוח משתלב). ספר חשבונות דלק אחד, שלושה מצבי זמן.

הגדרות עם מספרים. מוח ~120 גרם גלוקוז/יום. גליקוגן בכבד ~100 גרם (כ-למילה). קטונות מכסות כשליש מהאנרגיה המוחית ביום 3 של רעב, ועד לשני שלישים לאחר מספר שבועות. עוגן דיagnוסטי: HbA1c ≥ 6.5 % מצביע על סוכרת — גליקציה של הימוגלובין מצטברת לאורך חיי הכדור האדום של ~120 ימים, אינטגרציה של גלוקוז כמו מקליט.
המסקו (לוגיקת המתג). משתנה אחד — האם מזון מגיע? — חייב לקבוע את כל החצים של כל איבר בצורה הוליסטית. זוג הורמונים עם פעולות הפוכות על אותם אנזימים (PFK-2, סינתאז גליקוגן, פוספורילז, ליפאז) מבצעים זאת: גלוקגון מעלה cAMP, ולכן PKA מפוספרילצת אותם; אינסולין מוריד cAMP (פוספודיאסטראזה פועלת) ו מדליק פוספטאזות, כך שהאותם אנזימים מאבדים את הפוספטים שלהם. הקסם הוא ש-EONE אות, לא שבעה, מונע מ-4 איברים לעבוד במטרות נגדיות — והסוכרת מראה כמה עולה מחיר של פעולה במטרות נגדיות.
Worked example 1 — the timeline of a fast. Hour 0 (meal ends): גלוקוז יורד. שעות 0–4: דלק נבלע, אינסולין יורד. שעות 4–12: גליקוגן בכבד נגמר. שעות 12–24: הבנק ריק, גלוקונאוגנזיס מתגבר (חומצות אמינו מגרע, גליצרול, לקטט). ימים 1–3: חיסכון בחלבון מתחיל כשהקטונות עולים. יום 3: כשליש מאנרגיית המוח מקטונות; שבועות: עד לשני שלישים ✓ — כל מעבר הוא המנגנון של היחידה הקודמת, מתוזמן.
(מטופל בדמיון) תמונת מספר 2: אין אינסולין, ולכן למרות הגלוקוז הגבוה (מטופל בדיוני) תמונת טיפוס 1: אין אינסולין, ולכן למרות גלוקוז גבוה התאים קוראים רעב — שומן נשפך החוצה, קטונות מוצפות (חומצה, מאבד גלוקוז ומים (דיאורזה אוסמוטית, צמאות). כל סימפטום הוא איבוי גלוקוז ומים (דיאורזה אוסמוטית, צימאון). כל סימפטום הוא מתג אחד שקורא ארבעה איברים. תמונת טיפוס 2: אינסולין קיים אך טעויות נפוצות. קריאת אינסולין רק כ"מוריד גלוקוז" (הוא קובע
את הכיוון של כל הדלקים). טיפול בצורך הגלוקוז של המוח כהתגברותי הכיוון של ALL הדלקים). טיפול בצורך הגלוקוז המוחי כהתגבר (קטונות מחליפות חלקית בלבד, ונדרשים ימים). טעות HbA1c (3-חודשי (ממוצע) עם קריאת גלוקוז (דקות).
סיכום. אינסולין/גלוקאגון = מנוף אחד בכל האיברים; תזונה → אחסון, רעב → גליקוגנוליזה → גלוקונאוגנזה → קטונים ב~24 שעות / 3 יום שעון; HbA1c ≥ 6.5 % מאחד את המקליט; קטואוזיס סוכרתי הוא מטבוליזם רעב הפועל עם גלוקוז גבוה.