หลักสูตรนี้คืออะไร และการใช้หลักสูตรนี้
นี่คือหลักสูตรที่สองในสาขาเวชศาสตร์มหาวิทยาลัย: เวชศาสตร์ ชีวเคมี MED01 สร้างเซลล์; หลักสูตรนี้เติมเต็มมัน — โมเลกุล เอนไซม์ และการไหลของพลังงานที่ทำให้ร่างกายมนุษย์ทำงานต่อไป รวมถึงเคมีที่แพทย์คลินิกอ่านรู้เห็นทุกวัน และเคมีที่เวชศาสตร์ทางคลินิกอ่านทุกวัน
ขอบเขตของรายวิชา ระบุไว้เพียงครั้งเดียว: เป็นรายวิชาการศึกษา ไม่ใช่ปริญญาแพทยศาสตร์; ทุกกรณีด้านล่างนี้เป็นเรื่องสมมติ และข้อมูลนี้ไม่อนุญาตหรือชี้แนะการรักษา กรณีด้านล่างเป็นเรื่องสมมติ และสิ่งใดสิ่งหนึ่งในที่นี้ไม่ได้อนุญาตหรือแนะนำการรักษา
- หน่วย 2.1–2.2 คือกลไก: โปรตีนและจลนศาสตร์ของเอนไซม์
- หน่วย 2.3–2.4 คือพลังงาน: Glycolysis และเครื่องยนต์ออกซิเดชัน
- หน่วย 2.5–2.7 คือการจัดเก็บและการขนส่ง: ไกลโคเจน, ไขมัน, ไนโตรเจน
- หน่วย 2.8 เชื่อมโยง: สภาวะหลังทานอาหาร, ภาวะ fasting และโรคเบาหวาน ไว้ในกรอบเดียว
นิสัยทางยา: กลไกก่อนข้อเท็จจริง — ค่าคงที่เอนไซม์แต่ละตัวมีอยู่จริง, จำนวน ATP และการไหลของเชื้อเพลิงด้านล่างเป็นสิ่งที่ต้องคำนวณใหม่ และทุก ความเชื่อมโยงทางคลินิกจะระบุขั้นตอนที่ล้มเหลว
โปรตีนและโครงสร้างโปรตีน
ทำไมจึงสำคัญ. เอนไซม์, ตัวขนส่ง, แอนติบอดี, รีเซปเตอร์ — เกือบทุกอย่างที่เซลล์ทำ โปรตีนคือผู้กระทำ โครงสร้างไม่ใช่ เครื่องประดับ: ระดับหนึ่งสร้างจากอีกระดับหนึ่ง และทุกระดับคือจุดที่ การกลายพันธุ์สามารถทำลายได้
แนวคิด พร้อมภาพประกอบ สี่ระดับ: เบื้องต้น (ลำดับ กรดอะมิโน อ่านจาก N→C), รอง (hélix-$\alpha$, แผ่น-$\beta$, ยึดด้วยพันธะไฮโดรเจนของกระดูกสันหลัง), ตติย (การพับทั้ง 3D, แกนไฮโดรโฟบิก), จตุร (การประกอบหน่วยย่อย)

20 O1.33 ต่อโมเลกุล การหาที่มา (ความร่วมมือ). เมยโกลบินจับ O4 ด้วยรูปแบบง่าย ($\alpha_{2}\beta_{2}$), 4 กลุ่มฮีม, 64.5 กิโลดัลตัน, O₂ อย่างละหนึ่ง — สูงสุดถึง 4 O₂ ต่อโมเลกุล
การเกิดมา (ความร่วมมือ) เมโกลोบินจับ O₂ ด้วยสถานะ ไฮเพอร์โบลิก; ฮีโมโกลบินจับกับออกซิเจนในรูป Sigmoid S เพราะแต่ละ โมเลกุล O₂ ที่จับแล้วจะเปลี่ยนหน่วยย่อยจากสภาวะความผูกพันต่ำ T ไปเป็น ความสูงสูง R แบบง่าย — การจับช่วยให้การจับ: ความร่วมมือ ค่าสัมประสิทธิ์ฮิล $n_H \approx 2.8$ (สูงสุด 4) บ่งชี้ว่ามีการร่วมมือกัน "เกือบเต็มรูปแบบ" ผลทางสรีรวิทยา: ผลตอบแทน: การโหลดเต็มที่ในปอด ($pO_{2} \approx 100$ มม.ปรอท), ประมาณ 25 % การปล่อยในเนื้อเยื่อพัก ($pO_{2} \approx 40$ มม.ปรอท) และมากกว่า 60 % ใน กล้ามเนื้อทำงาน ($\approx 20$ มม.ปรอท) เนื่องจากส่วนกลางที่ชันของกราฟรูปตัว S ตั้งอยู่ ในช่วงนั้นพอดี
ตัวอย่างวิธีทำ 1 — การคำนวณการรับออกซิเจน. เลือดนำพา ~15 g Hb/dL; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL ×4 ตำแหน่ง = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL ต่อ mmol) — ค่าทฤษฎี 1.39 mL O₂ ต่อ g Hb ค่าที่วัดได้คือ 1.34 mL/g, 20.1 mL O₂/dL ✓ ต่ำเล็กน้อยเนื่องจาก ฮีโมโกลบินบางส่วนอยู่ในรูปที่ไม่สามารถจับกับ O₂ ได้
ตัวอย่างที่แสดงวิธีทำ 2 — เชื่อมโยงทางคลินิก: เม็ดหนึ่งที่มีประจุ (สมมติ patient) HbS: one Glu→Val at position 6 of the β chain turns a charged ข้อผิดพลาดที่พบบ่อย. การตีความคำว่า "denaturation" ว่าเป็นการตัดพันธะเปปไทด์ on a neighbour, polymerising the Hb and sickling the cell. Primary ผลกระทบด้านควาเทอเนารี follows. Sickle cell disease is a primary-structure disease with quaternary consequences.
ข้อผิดพลาดที่พบบ่อย. อ่านคำว่า "denaturation" ว่าคือการตัดพันธะเปปไทด์ (มันทำให้โครงร่างคลายออก แต่ลำดับยีนยังคงอยู่) การ treating ทุกการกลายพันธุ์ว่าเป็น รุนแรงเท่ากัน (การเปลี่ยนแปลงที่ผิวอาจไม่ปรากฏชัดเจน; แต่ตำแหน่งกึ่งกลางหรือ active-site นั้นไม่สามารถทำได้) การลืม ligands ของ Hb (H⁺, CO₂, 2,3-BPG ล้วน ทำให้กราฟเคลื่อนที่ — สรีรวิทยาอาศัยการเคลื่อนที่เหล่านี้)
สรุป. ลำดับ → โครงสร้าง → 3D → การประกอบ; Hb เป็น tetramer แบบอ้างอิงที่มี การจับแบบ sigmoid และ cooperative binding ($n_H \approx 2.8$); เม็ดเดียว เม็ด (Glu6Val) สามารถปรับพฤติกรรม quaternary ใหม่ได้
เอนไซม์และจลนศาสตร์เอนไซม์
ความสำคัญ. การวินิจฉัยเกือบทุกประการใน blood panel คือกิจกรรมของ เอนไซม์; ยาเกือบทุกชนิดเป็นสารยับยั้งเอนไซม์ จลนศาสตร์คือ วิธีที่ชีวเคมีกลายเป็นสิ่งที่วัดได้ — และวิธีการที่คุณจะอ่านผลห้องปฏิบัติการ
แนวคิด พร้อมภาพประกอบ. เอนไซม์ลดพลังงานกระตุ้น (activation barrier) และไม่ถูกเปลี่ยนแปลงจากการใช้งาน กราฟอัตราเร็วคือ Michaelis–Menten: $v = \frac{V_{max}[S]}{K_m + [S]}$, โดยที่ $K_m$ คือ ความเข้มข้นของสารตั้งต้นที่ความเร็วครึ่งสูงสุด

การหาสมการ (เหตุผลของการอิ่มตัว) E + S ⇌ ES → E + P: ที่ระดับต่ำ $[S]$, เอนไซม์ E ส่วนใหญ่จะอยู่ในรูปอิสระ ดังนั้น $v \approx (V_{max}/K_m)\cdot[S]$ — มีอันดับแรกเทียบกับ S ที่ระดับสูง $[S]$, E ทั้งหมดจะจับกับ ES: $v$ จะเข้าใกล้ $V_{max}$ — มีอันดับศูนย์ เส้นผกผันสองเท่า (Lineweaver–Burk) แสดง $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ เปลี่ยนไฮเปอร์โบลาให้เป็น เส้นตรง: จุดตัดแกน y $1/V_{max}$, จุดตัดแกน x $-1/K_m$.
ตัวอย่างวิธีทำ 1 — การอ่านข้อมูล. เอนไซม์ให้ค่า $v = 33$ µmol/min ที่ความเข้มข้น $[S] = 1$ mM และ $v = 60$ ที่ $[S] = 4$ mM. เขียน $v = V[S]/(K+[S])$ สองเท่าแล้วหาร: $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓ ตรวจสอบจุดครึ่งหนึ่ง: เมื่อ $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
ตัวอย่างวิธีทำ 2 — ความเชื่อมโยงทางคลินิก: ตัวยับยั้งแบบแข่งขัน (ผู้ป่วยสมมติที่ใช้ยาในกลุ่มสตาติน) ยาจำลอง สารตั้งต้นและยึดติดกับตำแหน่งทำงาน (การยับยั้งแบบแข่งขัน ): ค่า $K_m$ ที่ปรากฏเพิ่มขึ้น, $V_{max}$ ไม่เปลี่ยนแปลง — แก้ไขได้ด้วยสารตั้งต้นเพิ่มมากขึ้น และกราฟ L-B จะ ตัดกัน ON แกน y. การจับแบบไม่แข่งขันที่ตำแหน่งอื่นจะลด $V_{max}$ ลง แต่คง $K_m$ ไว้ (กราฟจะตัดกัน ON แกน x). การอ่าน ว่าเส้นไหนเคลื่อนที่ คือกลไกการยับยั้ง
ข้อผิดพลาดทั่วไป การเรียก $K_m$ ว่าความผูกพัน (มันคือความเข้มข้น; ค่า $K_m$ เล็กมักหมายถึงความผูกพันที่ปรากฏสูง) การจับคู่ข้อมูลสองจุดในใจโดยไม่ตรวจสอบจุดที่สาม การคาดหวังว่าสารยับยั้งจะเปลี่ยนปริมาณ เอนไซม์ (การเหนี่ยวนำทำให้; สารยับยั้งเปลี่ยนกิจกรรม) การแลกเปลี่ยนพลังงานแม่นยำ: ปฏิกิริยาที่เชื่อมโยงกันเกิดขึ้นได้เฉพาะเมื่อพลังงานอิสระลดลงเท่านั้น Glycolysis เป็นวิธีสร้าง ATP ที่เก่าแก่ที่สุดและถูกเก็บรักษาไว้ดีที่สุด — และ
สรุป. $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ ที่ครึ่งหนึ่งของ $V_{max}$; แบบแข่งขัน: $K_m$↑ $V_{max}$ เหมือนเดิม; แบบไม่แข่งขัน: $V_{max}$↓ $K_m$ เหมือนเดิม; จุดตัดของ L-B ใช้ระบุประเภท
ชีวพลังงานและกระบวนการ Glycolysis
ทำไมสิ่งนี้ถึงสำคัญ เซลล์ต้องชำระค่าทุกสิ่งด้วย ATP และระบบแลกเปลี่ยนเงินตราทางชีวภาพนั้นแม่นยำ: ปฏิกิริยาที่คู่กันจะดำเนินไปได้เฉพาะในทิศทางที่พลังงานอิสระลดลงเท่านั้น แนวคิด พร้อมภาพประกอบ การเชื่อมโยง: ปฏิกิริยาที่ไม่เอื้ออำนวยจะเกิดขึ้นได้ พลังงาน Glycolysis เป็นวิธีสร้าง ATP ที่เก่าแก่และถูกรักษาไว้มากที่สุด — และ Glycolysis เป็นวิธีสร้าง ATP ที่เก่าแก่ที่สุดและถูกอนุรักษ์ไว้ดีที่สุด — และเป็นจุดยึดของเมตาบอลิซึมสำหรับทุกหน่วยเรียนถัดไป
แนวคิด พร้อมภาพประกอบ การคู่กัน: ปฏิกิริยาที่ไม่เอื้ออำนวยเกิดขึ้น เมื่อถูกยึดติดกับตัวรับที่เอื้ออำนวยเท่านั้น ($\Delta G$ เพิ่มเข้า) กระบวนการสลายน้ำตาลกลูโคส แยกกลูโคสหนึ่งโมเลกุล (6 C) ออกเป็นไพรูเวตสองโมเลกุล (3 C): ระยะลงทุน ระยะ (2 ATP ใช้ไป), ระยะคืนทุน (4 ATP + 2 NADH สร้างขึ้น), สุทธิ 2 ATP + 2 NADH ✓ — ไม่ขึ้นอยู่กับออกซิเจน

คำจำกัดความพร้อมตัวเลข สามขั้นตอนที่เป็นไปไม่ได้ย้อนกลับโดยหลักการ ($\Delta G^{\circ\prime}$ มีค่าลบอย่างมาก): เฮกโซไคเนส (−16.7 kJ/mol), PFK-1 (−14.2, ขั้นตอนที่ตัดสินใจอย่างเด็ดขาดและเป็น การควบคุมหลัก), ไพรูเวทไคเนส (−31.4). โดยไม่มี O₂, NAD⁺ จะถูกสร้างใหม่โดย เอนไซม์แลคเตตดีไฮโดรเจนเนส: ไพรูเวท + NADH → แลคเตต (การหมัก)
การพิสูจน์ (ทำไม PFK-1 จึงเป็นประตู) ทฤษฎีการควบคุมระบุว่า: ให้เป็นประตูที่ขั้นตอนแรกของการผูกมัดและไม่ย้อนกลับ เฮกโซไคเนสมีการผูกมัดล่วงหน้า the first committed, irreversible step. Hexokinase is pre-committed (น้ำตาลชนิดอื่นใช้เอนไซม์นี้); ไพรูเวทไคเนสช้าเกินไป (การลงทุนได้ เกิดขึ้นไปแล้ว) PFK-1 เป็นขั้นตอนแรกที่เป็นเอกลักษณ์เฉพาะของไกลโคไลซิส — ดังนั้น AMP และ ADP กระตุ้นมัน; ATP และซิเตรตยับยั้งมัน; ฟรุกโตส-2,6- ไบสฟอสเฟต (สัญญาณอินซูลิน) กระตุ้นมันอย่างรุนแรง เอนไซม์ตัวเดียวมองเห็น สถานะพลังงานทั้งหมดของเซลล์
ตัวอย่างที่มีคำอธิบาย 1 — บัญชี ATP ต่อกลูโคส: −2 (การลงทุน) +4 (ผลตอบแทน) = สุทธิ 2 ATP; plus 2 NADH (ในไซโทพลาซึม — มีค่าเท่ากับ 5 ATP ผ่าน มาเลตเชลล์หรือ 3 ผ่านกลีเซอโรลฟอสเฟต, หน่วย 2.4) ในสภาวะไม่ใช้ออกซิเจน 2 NADH ทั้งหมดจะถูกใช้เพื่อรีดิวซ์ไพรูเวตกลับเป็นแลคเตท: การหายใจแบบไม่ใช้ออกซิเจน มีค่าเท่ากับ 2 ATP พอดี ✓
ตัวอย่างที่มีคำอธิบาย 2 — ความเชื่อมโยงทางคลินิก: ประตูที่ไม่สามารถเปิดได้ (ผู้ป่วยสมมติ) ปวดกล้ามเนื้อภายในไม่กี่วินาทีหลังจากวิ่ง sprint, ไม่มีการเพิ่มขึ้นของ แลคเตตในเลือด: ไกลโคเจนฟอสโฟริเลสทำงาน (ไกลโคเจนสลายตัว) แต่ PFK-1 ขาดหาย — น้ำตาลฟอสเฟตสะสมก่อนประตู ผลตอบแทน ไม่เคยมาถึง ATP ลดลง และไมโอโกลบินรั่วไหล ประตูหนึ่ง, syndrome การออกแรงหนึ่ง: ขั้นตอนที่ถูกควบคุม คือตำแหน่งของโรค
ข้อผิดพลาดที่พบบ่อย การนับ ATP รวมแทนที่จะเป็น ATPสุทธิ การกำหนด การควบคุมที่ขั้นตอนที่ย้อนกลับได้ (การควบคุมอยู่ที่ขั้นตอนที่ไม่สามารถย้อนกลับได้) ประตู) การลืมว่าการรีเจนเนอเรต NAD⁺ แบบไม่ใช้ออกซิเจนคือเหตุผลว่าทำไมแลคเตทจึงเกิดขึ้น (ไม่ใช่ผลิตภัณฑ์เสีย — แต่เป็นความจำเป็นด้านเรดออกซ์)
สรุป. กลูโคส → 2 ไพรูเวต, ได้ ATP สุทธิ 2 + 2 NADH, มี ประตูที่ไม่สามารถย้อนกลับได้กับ PFK-1 ที่ผูกมัด; AMP/ADP เปิด, ATP/citrate ปิด; แลคเตทช่วยนำ NAD⁺ กลับมาเมื่อ O₂ หมด.
วัฏจักร TCA และการฟอสฟอริเลตแบบออกซิเดทีฟ
ทำไมถึงสำคัญ. ออกซิเจนมีหน้าที่เดียวในร่างกาย: คือรับ อิเล็กตรอนที่ปลายสายการลำเลียงอิเล็กตรอน วัฏจักร TCA เปลี่ยน หน่วยอะเซทิลให้เป็นอิเล็กตรอนเหล่านั้น และเอนไซม์ ATP synthase จะเปลี่ยนพลังงานจากการ ไหลลงนี้ให้กลายเป็น ~90 % ของ ATP ในร่างกาย หน่วยนี้จะทำให้การเผาผลาญพลังงาน เป็นเชิงปริมาณได้ชัดเจน
แนวคิด พร้อมภาพประกอบ. วัฏจักร TCA (Krebs): อะเซทิล-CoA (2 C) + ออกซาโลเอททेट (4 C) → ซิเตรต (6 C) → การ脱คาร์บอกซิลสองครั้ง → FADH3, 1 GTP**. สายการลำเลียงอิเล็กตรอน (เยื่อหุ้ม FADH₂, 1 GTP**. ห่วงโซ่การถ่ายทอดอิเล็กตรอน (เยื่อหุ้ม ไมโทคอนเดรียชั้นใน): คอมเพล็กซ์ I, III, IV ปั๊ม H⁺ ออก; การไหลย้อนกลับ อิเล็กตรอนไหลลงสู่ออกซิเจน; เกรเดียนต์ที่สร้างขึ้นเปรียบเสมือนเขื่อน; ATP synthase เปรียบเสมือนกังหัน
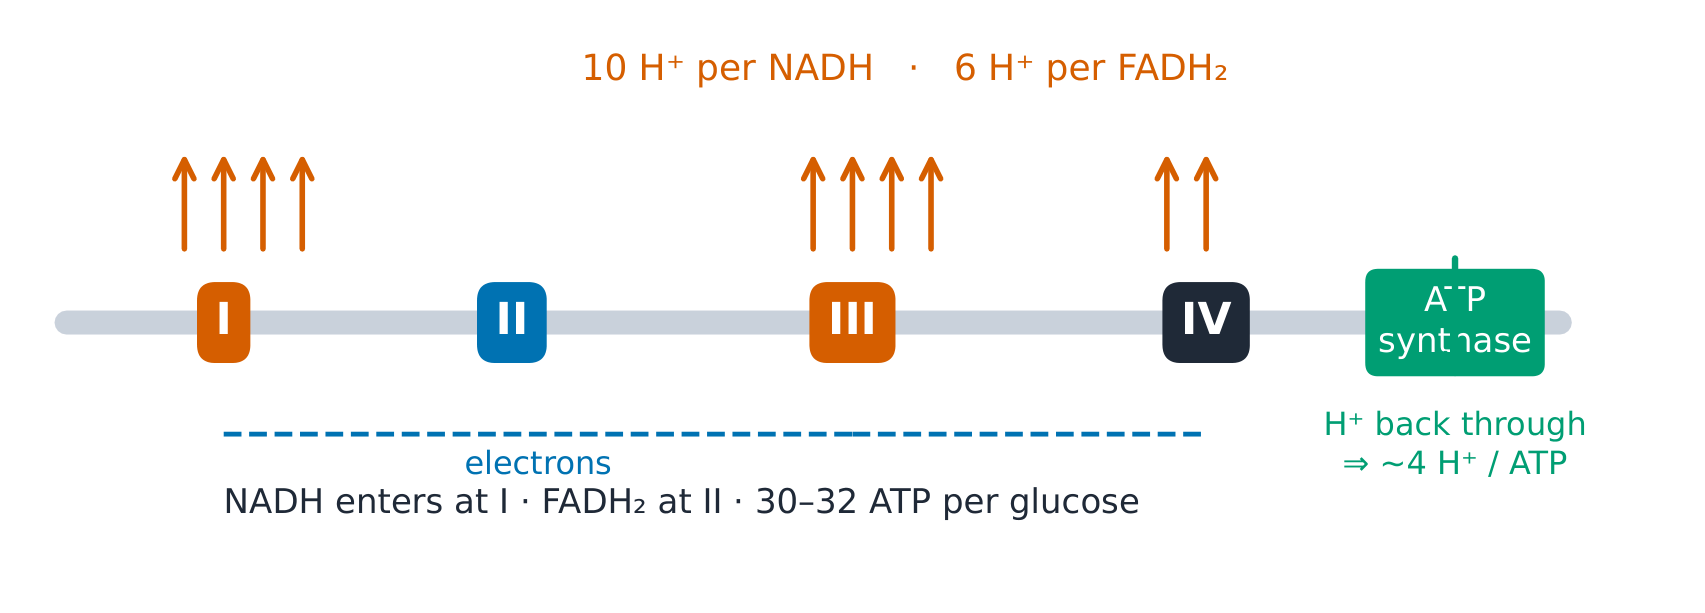
การคำนวณผล (จำนวน ATP ในปัจจุบัน) ตาม NADH: คอมเพล็กซ์ I+III+IV ปั๊ม 4+4+2 = 10 H⁺; ต่อ FADH₂ (เข้าสู่ที่ II): III+IV = 6 H⁺. ATP synthase ต้องการ ~3 H⁺/ATP บวกกับ 1 H⁺ เพื่อนำเข้า Pi: 4 H⁺/ATP ดังนั้น NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — และต่อหนึ่ง กลูโคส เมื่อนับตัวพาทั้งหมด: 2 (ATP จากไกลโคไลซิส) + 2×2.5 (NADH ของมัน, ระบบส่งผ่านมาลาเท) NADH, มาลาเทตชัตเตอร์) + 2×2.5 (NADH ของ pyruvate dehydrogenase) + 2 GTP + 6×2.5 (NADH ของ TCA) + 2×1.5 = 32 ATP เมื่อใช้มาลาเทตชัตเตอร์, 30 ด้วยกลีเซอโรลฟอสเฟต (แบบเก่าใช้ "36–38" ที่ค่า P/O ปัดเศษเป็น 3 และ 2).
ตัวอย่างวิธีทำ 1 — คณิตศาสตร์อะซีetyl. กลูโคสหนึ่งโมเลกุล → 2 พิรูเวต → 2 อะซีetyl-CoA (NADH 2 จากเอนไซม์พิรูเวตดีไฮโดรเจนเนส) With เอนไซม์พิรูเวตดีไฮโดรเจนเนส, การหมุนวงจร TCA สองรอบรวมกับการเข้าสู่วงจร ให้ 2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 ATP-equivalents — สี่ในห้าของ งบประมาณทางแอโรบิกทั้งหมด (25 ของ 32), ทั้งหมดมาจากคู่อิเล็กตรอน ตัวอย่างวิธีทำ ₂ — เชื่อมโยงทางคลินิก: เทอร์ไบน์ที่ติดขัด. (กรณีศึกษาสมมติ
ตัวอย่างปฏิบัติ 2 — เชื่อมโยงทางคลินิก: กังหันที่ถูกขัดขวาง (เรื่องสมมติ overdose vignette) collapse with bright-red venous blood: cyanide binds คอมเพล็กซ์ IV อิเล็กตรอนไม่สามารถถึง O₂ การปั๊มหยุดลง ความต่างศักย์ collapses and ATP synthase stops (it can even run backwards, spending ATP ) เคมีอธิบายสัญญาณ: เนื้อเยื่อไม่สามารถดึง O₂ ออกได้ (เลือดดำยังคงสีแดง) lactate soars (glycolysis alone remains). Treatments exist to bypass or แข่งขันกับจุดติดขัด — กลไกก่อน ยาแก้พิษทีหลัง
ข้อผิดพลาดทั่วไป การกล่าวว่าวัฏจักร "สร้าง ATP" โดยตรง (มันสร้าง GTP + ตัวพาที่ลดตัวแล้ว; สายการส่งอิเล็กตรอนสร้างความต่างศักย์) นับ CO₂ เป็น จาก "คาร์บอนอะซีติลของรอบนี้" (พวกมันออกไปในรอบที่ LATER — ที่ วัฏจักรผสมคาร์บอนของมัน) ใช้ P/O 3 และ 2 โดยไม่ระบุว่าใช้ ระเบียบแบบแผนใด
สรุป. อะเซทิล → 3 NADH + 1 FADH₂ + 1 GTP ต่อรอบ; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP ต่อกลูโคส (การนับสมัยใหม่, ขึ้นอยู่กับระบบขนส่ง); คอมเพล็กซ์ IV เป็นที่ที่ออกซิเจนได้รับผลตอบแทน
ไกโคเจนและกลูโคเนโอเจเนซิส
เหตุผลที่สำคัญ. สมองใช้พลังงาน ~120 กรัม ของกลูโคตต่อวันและเก็บ ไว้ไม่ได้ ระหว่างมื้ออาหาร ร่างกายอาศัยแหล่งเก็บกลูโคสสองแห่งที่มีเจ้าของ ต่างกัน — และในการอดอาหาร ร่างกายต้องสร้างกลูโคสขึ้นใหม่ทั้งหมด
แนวคิด พร้อมภาพประกอบ ไคโคเจน: โพลีเมอร์กลูโคสแบบกิ่งก้าน ($\alpha 1\to4$ สายโซ่, มี $\alpha 1\to6$ กิ่งทุก ~8–12 หน่วยตกค้าง). ตับเก็บ ~100 กรัม — ส่งออกกลูโคสสู่เลือด; กล้ามเนื้อ เก็บไว้ ~400 g — เก็บไว้, เผาผลาญในท้องถิ่น

นิยามพร้อมตัวเลข. ไคโคเจนโฟสโฟริเลสตัดสาย $\alpha1\to4$ (ด้วยปฏิกิริยาฟอสโฟโรไลซิส ไม่ต้องใช้ ATP); เอนไซม์กำจัดกิ่ง จัดการกับ stubs ที่ $\alpha1\to6$. กลูโคเนโอเจเนซิส ย้อนกลับ ไกลโคไลซิสขึ้นเขาผ่านประตูทั้งสาม — ด้วยค่าใช้จ่าย 4 ATP + 2 GTP
- 2 NADH ต่อกลูโคส (6 พลังงานสูง, เทียบกับการสลายน้ำตาลที่มีผลสุทธิ การได้มา 2).
ที่มา (ทำไมต้องสองธนาคาร). กล้ามเนื้อไม่มีกลูโคส-6-ฟอสฟาเทส: กลูโคส-6-P ของมันถูกกักไว้และส่งเข้าไกลโคไลซิส — คุณไม่สามารถส่งออกสิ่งที่ ไม่สามารถถอดหมู่ฟอสเฟตออกได้ ตับมีเอนไซม์นี้: ไทรोजีน → กลูโคส-1-P → กลูโคส-6-P → กลูโคสอิสระ → เลือด. เอนไซม์ตัวเดียว ที่มีหรือขาดอยู่กำหนดบทบาทของอวัยวะ;ฮอร์โมนมุ่งเป้าไปที่มัน — กลูคาโกน (เฉพาะตับ) กระตุ้นการสลาย, อินซูลิน กระตุ้นการสร้าง.
ตัวอย่างคำนวณ 1 — งบประมาณตลอดคืน. ไทรोजีนในตับ ~100 กรัม ≈ 400 กิโลแคลอรี; สมองต้องการ ~120 กรัม/วัน ≈ 480 กิโลแคลอรี/วัน. ธนาคารครอบคลุม การใช้งานสมองประมาณหนึ่งวัน ✓ — หลัง fasting 12–24 ชม., การสร้างกลูโคสใหม่ ต้องรับหน้าที่ต่อ (กรดอะมิโนจากกล้ามเนื้อ, กลีเซอรอลจากไขมัน, แลคเตท ผ่านวงจรโครี).
ตัวอย่างคำนวณ 2 — เชื่อมโยงทางคลินิก: นักวิ่งที่ไม่สามารถเข้าถึง ธนาคารได้. (เรื่องสมมติ) ปวดเกร็งและปัสสาวะสีเข้มหลังวิ่งสปรินต์: มิวซิน ฟอสโฟริเลสขาดหาย (รูปแบบแมคคาร์เดล): ไทรोजีนถูกจัดเก็บแต่ เข้าถึงไม่ได้ ATP ลดลง ไมโกลบินรั่วไหล และการเพิ่มขึ้นของแลคเตทที่คาดหวัง ไม่เคยเกิดขึ้น การตรวจห้องปฏิบัติการคือกลไก: แลคเตทหายไปแม้พยายามอย่างเต็มที่ จะชี้จุดแตกหักก่อนประตูไกลโคไลซิส ความพยายามสูงสุด ทำให้จุดติดขัดเกิดขึ้นก่อนประตูทางเข้า glycolytic
Common mistakes. Treating the two glycogen banks as one (muscle glycogen never becomes blood glucose). Counting gluconeogenesis as "glycolysis ย้อนกลับฟรี" (มัน costing 6 high-energy phosphates) Placing glucagon receptors on muscle (there are none).
**สรุป.**Liver ~100 g exports (has the phosphatase); muscle ~400 g keeps (lacks it); phosphorylase + debrancher break, synthase + branching enzyme สร้าง; glucagon/insulin ตั้งค่าสัญญาณ; gluconeogenesis costing 4 ATP + 2 GTP + 2 NADH ต่อกลูโคส
Lipid metabolism
ทำไมถึงสำคัญ ไขมันคือคลังพลังงานระยะยาวของร่างกาย — และ ปัญหาจราจรหนักที่สุด: ไม่ละลายน้ำ,.train lipids ต้องมี transport fleet whose failures are the world's most common disease.
The idea, with a picture. β-oxidation β in mitochondria: each cycle trims 2 C off a fatty acyl-CoA, yielding 1 acetyl-CoA + 1 FADH₂ + 1 NADH. Transport: lipoproteins — chylomicrons (intestine → tissues), VLDL (liver → tissues), LDL (cholesterol to tissues — ตัวพา "ไม่ดี", HDL (cholesterol กลับไปที่ตับ — ตัวพา "good" one).

การคำนวณ (จำนวนคาร์บอนของพาลมิเตต). พาลมิเตต (C16): $\beta$- การออกซิเดชันต้องใช้ $(16/2) - 1 = 7$ รอบ → 8 อะเซทิล-CoA + 7 FADH₂ + 7 NADH. ผลผลิต: อะเซทิลแต่ละตัวมีค่า 10 เทียบเท่าผ่านวงจร ($3\times2.5 + 1.5 + 1$), ดังนั้น 8 อะเซทิล ให้ 80; ส่วน 7 FADH₂ ให้ $7\times1.5 = 10.5$ และ 7 NADH ให้ $7\times2.5 = 17.5$; ลบ 2 สำหรับการกระตุ้น: 106 ATP ต่อหนึ่งโมเลกุลของพาลมิเตต ✓ — เมื่อเทียบกับ 30–32 ต่อ กลูโคส: ไขมันให้พลังงานหลายเท่าต่อคาร์บอน เนื่องจากมีการลดตัวสูงมาก จนเกือบสมบูรณ์แล้ว
ตัวอย่างวิธีทำ 1 —KETONES, เชื้อเพลิงหลักของสมอง. การอดอาหารนาน: อะเซทิล-CoA จาก β-oxidation มีปริมาณเกินกว่าที่วงจร TCA จะจัดการได้ (OAA ถูกดึงไปใช้ gluconeogenesis) ดังนั้นตับจะรวมมันเข้าเป็น ketone bodies (acetoacetate, β-hydroxybutyrate) and exports them — water-soluble, ข้ามเข้าสู่สมอง มีค่าประมาณ 21.5 ATP ต่อ β-ไฮดรอกซีบิวไทเรต ภายในวัน 3 สารเคทอนจัดหาพลังงานให้สมองประมาณหนึ่งในสาม และหลังจากผ่านไปหลาย สัปดาห์สูงถึงสองในสาม ช่วยประหยัดโปรตีนกล้ามเนื้อ ✓
ตัวอย่างทำพร้อมกัน 2 — เชื่อมโยงทางคลินิก: เครื่องยนต์ไร้ประกายไฟ (เด็กทารกสมมติ) ภาวะน้ำตาลในเลือดต่ำโดยไม่เกิด ketones: เอนไซม์ acyl-CoA dehydrogenase ขาดหาย, β-oxidation หยุดชะงัก, ไม่สามารถสร้าง ketones ได้ และไม่มี ATP เพื่อขับเคลื่อนกระบวนการสร้างกลูโคสใหม่ — ความล้มเหลวสองด้านนี้อธิบายผล ในห้องปฏิบัติการทั้งสองอย่างได้ลายลักษณ์เฉพาะของการวินิจฉัย (น้ำตาลในเลือดต่ำ coupled with low ketones) เป็นกลไกที่อ่านได้จากหยดเลือดบนกระดาษ
ข้อผิดพลาดที่พบบ่อย. ลืมค่าใช้จ่ายในการกระตุ้น (−2 หน่วย) ในจำนวน ATP การคาดหวังว่าสมองจะเผาผลาญกรดไขมันสายยาว (แต่ ออกซิเดชันกรดไขมันน้อยมาก — สารเคทอนจึงเป็นทางเลือกแทน การเรียก LDL ว่า "คอเลสเตอรอล" (มันคืออนุภาคพาหะ)
สรุป. β-oxidation: C16 → 8 acetyl-CoA + 7×(FADH₂+NADH) → 106 ATP สุทธิ; chylomicron/VLDL ออกไป, LDL ส่งมอบ, HDL กลับมา; ภาวะ fasting ทำให้ ตับกลายเป็นแหล่งส่งออกคีโตนบอดี
เมตาบอลิซึมของไนโตรเจนและวัฏจักรยูเรีย
เหตุผลที่สำคัญ. ไนโตรเจนไม่สามารถจัดเก็บได้: กรดอะมิโนทุกตัวที่ไม่ จำเป็นในวันนี้ต้องผ่านการตัดหมู่เอมีนวันนี้ และแอมโมเนียที่ถูกปล่อยออกมา จะเป็นพิษต่อระบบประสาทในระดับไมโครโมลาร์ การกำจัดไม่ใช่ทางเลือก — มัน เป็นกระบวนการ 5 ขั้นตอนบนสายพานลำเลียงข้ามสองสเปซ
แนวคิด พร้อมภาพประกอบ. หมู่เอมีนไหลเข้าหา กลูตาเมต (ทรานส์มิเนชั่น: กรดอะมิโน + α-คีโตนก্লูตาเรต ⇌ คีโตน-กรด + กลูตาเมต), จากนั้น oxidative deamination จะปลดปล่อย NH₃ ในไมโทคอนเดรียของตับ. วัฏจักร ยูเรีย ทำงานข้ามไมโทคอนเดรียและไซโทโซล: NH₃ + CO₂ → carbamoyl phosphate → citrulline → (cytosol) arginino- succinate → arginine → ยูเรีย + ornithine ที่ถูกสร้างใหม่

นิยามที่มีตัวเลข. ยูเรีย: 2 N ต่อโมเลกุล (หนึ่งตัวมาจาก NH₃, อีกหนึ่งตัวมาจากแอสพาร์เตต) ใช้พลังงาน 3 ATP (4 พันธะพลังงานสูง) ต่อยูเรีย แอมโมเนียในเลือดปกติอยู่ที่ประมาณ ~10–35 µmol/L — มีค่าแคบมาก เนื่องจากสมอง ไม่มีวงจรยูเรีย
ที่มาของกระบวนการ (ทำไมต้องที่ตับ และทำไมต้องตรงจุดนี้). การกำจัดสารพิษจากแอมโมเนีย ต้องเกิดขึ้นก่อนเข้าสู่ระบบไหลเวียนโลหิตหลัก: เลือดจากทางเดินอาหารจะไหลตรงเข้าสู่ ตับ ซึ่งจะดูดซับกรดอะมิโนและแอมโมเนียในช่วงแรกผ่านได้ทันที สมองและกล้ามเนื้อไม่สามารถรับภาระของวงจรนี้ได้—they export nitrogen as glutamine (the ammonia taxi) และ อัลานีน (รถแท็กซี่นำพาคาร์บอนและไนโตรเจน) เพื่อส่งให้ตับ นำไปประมวลผล ตำแหน่งที่ตั้งคือระบบความปลอดภัย และ alanine (แท็กซี่นำคาร์บอนและไนโตรเจน) เพื่อส่งให้ตับ สามารถประมวลผลได้ ตำแหน่งที่ตั้งคือระบบความปลอดภัย
ตัวอย่างที่แสดงวิธีทำ 1 — บัญชีรายวัน อาหารทั่วไปมีการหมุนเวียน ของมวลโมเลกุล = 70 % N ตามมวล): 100 กรัม ยูเรีย × 11 ≈ 16 กรัม N ✓ — ปัสสาวะ (25–35 g/day). Cross-check: each urea carries 2 N (28 g of 60 g molecule = 47 % N by mass): 30 g urea × 0.47 ≈ 14 g N ✓ — the urine อาการซึมเซาแล้วcoma หลังได้รับนมครั้งแรก แอมโมเนียพุ่งสูง,
หรือออร์โทริกแอซิดในปัสสาวะ: การขาดเอนไซม์ ornithine transcarbamylase — วงจรติดขัดที่ขั้นตอน 2, carbamoyl phosphate ล้นออกไปสู่เส้นทาง pyrimidine กรดอโรติกในปัสสาวะ: การขาดเอนไซม์ ornithine transcarbamylase — ซึ่ง orotic acid ในปัสสาวะ: การขาด ornithine transcarbamylase — การ cycle บิดเบงที่ขั้นตอน 2, carbamoyl phosphate รั่วไหลเข้าสู่ pyrimidine สังเคราะห์ (ดังนั้นจึงมีโอโรเรต) การจัดการตามกลไกจะเริ่มต้นด้วย block: จำกัดการบริโภคไนโตรเจน, ดูดซับแอมโมเนีย, ให้สารทางเลือก — ชีวเคมีได้กำหนดโปรโตคอลนี้ไว้แล้ว
ข้อผิดพลาดที่พบบ่อย. เขียนว่า "ยูเรียกำจัดแอมโมเนีย" (ซึ่งมันกำจัด TWO ไนโตรเจน: NH₃ และหมู่เอมิโนของแอสปาร์เต). คาดหวังว่ามีเอนไซม์ในวงจรยูเรียอยู่ในสมอง (พบเฉพาะในตับ; นั่นคือสาเหตุที่แอมโมเนียทำลายสมอง) เอนไซม์ในสมอง (เฉพาะในตับเท่านั้น; นั่นคือเหตุผลที่แอมโมเนียโจมตีสมอง) ละเลยต้นทุน ATP (การกำจัดไนโตรเจนมีราคาแพง: 4 พันธะ)
สรุป. Transamination นำ N ไปยังกลูตาเมต; วงจรตับ (2 ช่องว่างภายในเซลล์, 5 เอนไซม์) สร้างยูเรียที่ 3 ATP ต่อรอบ, ส่งออก 2 N; ชี้ไปยัง OTC ชี้ไปที่ OTC
การบูรณาการการเผาผลาญ: หลังทานอาหาร, อดอาหาร และโรคเบาหวาน
ทำไมถึงสำคัญ. การเผาผลาญเป็นระบบเดียวที่มีสวิตช์ อินซูลินและ กลูคาโกนคือคันโยก อวัยวะคือเกียร์ และโรคเบาหวานคือ สวิตช์ติดขัด — การบูรณาการที่สำคัญที่สุดในการแพทย์
แนวคิดพร้อมภาพประกอบ ภาวะหลังทานอาหาร (อินซูลินสูง): กลูโคสเข้าสู่เซลล์ทั้งหมด, เกล็ดน้ำตาลเต็ม, คาร์บอนส่วนเกินไปเปลี่ยนเป็นไขมัน ภาวะหิวโหย (กลูคากอนสูง): การสลายไกลโคเจนในตับ (หลายชั่วโมง) → กลูโคเนโอเจเนซิส (หลายวัน) → Ketogenesis (สมองปรับตัว) บัญชีพลังงานหนึ่ง, สามช่วงเวลา

นิยามพร้อมตัวเลข. สมอง ~120 ก.ก. กลูโคส/วัน. ไทรोजีนในตับ ~100 กรัม (~ต่อวัน) คีโตน_vecs ครอบคลุมพลังงานสมองประมาณหนึ่งในสามในช่วงวันที่ 3 ของการหิวโหย และเพิ่มขึ้นเป็นสอง Compiled ในสัปดาห์ถัดมา จุดอ้างอิงสำหรับการวินิจฉัย: HbA1c ≥ 6.5 % บ่งบอกโรคเบาหวาน — การ Glycation ของฮีโมโกลบินสะสมตลอดอายุขัยของเม็ดเลือดแดง ~120 วัน, กระบวนการได้มา (ตรรกะการสลับ). ตัวแปรเดียว — มีอาหารเข้ามาหรือไม่?
กระบวนการได้มา (ตรรกะของการสลับสถานะ) ตัวแปรเดียว — อาหารกำลังเข้ามาหรือไม่? ฟอสโฟริเลส,.train lipase) ทำสิ่งนี้ได้: อินซูลินทำให้ฟอสโฟริเลตผ่าน phosphodiesterase-ลง, กลูคาโงนผ่าน cAMP-ขึ้น ความสวยงามอยู่ที่ว่าสัญญาณเพียง ONE ตัว ไม่ใช่เจ็ด, รักษา 2 อวัยวะไม่ให้ทำงานขัดแย้งกัน — ฟอสโฟริเลส,.trainase) ทำหน้าที่นี้: กลูคากอนเพิ่ม cAMP ดังนั้น PKA ฟอสฟอริเลตเอนไซม์เหล่านี้; อินซูลินลด cAMP (เปิด phosphodiesterase) และ เปิด phosphatases ทำให้เอนไซม์เดียวกันสูญเสียหมู่ฟอสเฟต ความประณีตอยู่ที่ ONE สัญญาณ ไม่ใช่เจ็ด ซึ่งป้องกัน 4 อวัยวะไม่ให้ทำงานขัดแย้งกัน — และโรคเบาหวานแสดงถึงต้นทุนของการทำงานขัดแย้งนั้น
ตัวอย่างคำนวณ 1 — เวลาของภาวะหิวโหย ชั่วโมงที่ 0 (มื้ออาหารสิ้นสุด): กลูโคสลดลง ชั่วโมงที่ 0–4: พลังงานที่ดูดซึมถูกใช้ไป อินซูลินลดลง ชั่วโมงที่ 4–12: Glycogen ของตับถูกใช้หมด. ชั่วโมง 12–24: ธนาคารว่างเปล่า, gluconeogenesis เร่งขึ้น (กรดอะมิโนจากกล้ามเนื้อ, Glycerol, lactate) วัน 1–3: การประหยัดโปรตีน เริ่มต้นเมื่อคีโตน_vecs เพิ่มขึ้น วันที่ 3: ประมาณหนึ่งในสามของพลังงานสมอง จากคีโทน; สัปดาห์: สูงถึงสองในสาม ✓ — แต่ละ การเปลี่ยนผ่านคือกลไกของหน่วยก่อนหน้า, กำหนดเวลา.
ตัวอย่างเชิงลึก 2 — เชื่อมโยงทางคลินิก: สวิตช์ติดขัด ทั้งสองด้าน (ผู้ป่วยสมมติ) รูปแบบ 1: ไม่มีอินซูลิน ดังนั้นแม้ระดับน้ำตาลในเลือดสูง เซลล์อ่านว่า FASTING — ไขมันไหลออก, ketones ล้น (acidosis, การหายใจแบบ Kussmaul เพื่อชดเชยโดยปอด), กล้ามเนื้อสลายตัว ปัสสาวะ สูญเสียกลูโคสและน้ำ (ภาวะปัสสาวะออกมากจากแรงดันออสโมติก, กระหายน้ำ) อาการทุกประการคือ สวิตช์หนึ่งที่ถูกอ่านโดยสี่อวัยวะ รูปแบบ 2: มีอินซูลินแต่ ถูกต้านทาน — บัญชีเดียวกันลูกศรอ่อนลง จากหลายปีแทนที่จะเป็นชั่วโมง
ข้อผิดพลาดที่พบบ่อย การอ่านค่าอินซูลินว่าเป็น "ลดน้ำตาล" เพียงอย่างเดียว (มันกำหนด the direction of ALL fuels). Treating brain glucose need as negotiable (แคทโตน_vecs ชดเชยได้เพียงบางส่วน และใช้เวลาหลายวัน) สับสนระหว่าง HbA1c (3 เดือน เฉลี่ย) กับผลการตรวจน้ำตาล (นาที)
สรุป. Insulin/glucagon = คานขยี้เดียวสำหรับทุกอวัยวะ; fed → เก็บเก็บ, fasting → Glycogenolysis → Gluconeogenesis → แครทโตน_vecs ตามนาฬิกา ~24 ชม. / 3 วัน HbA1c ≥ 6.5 % รวบรวมข้อมูลรวม; ภาวะ Spiceacidosis เป็น กระบวนการ fasting ที่ทำงานอยู่พร้อมระดับน้ำตาลสูง