Qué es este curso y cómo usarlo
This is the second course in University Medicine: medical biochemistry. MED01 built the cell; this course fills it — y la química que la medicina clínica lee cada día. Límite de alcance, enunciado una sola vez: un curso de estudio, no un grado médico; cada
caso a continuación es ficticio y nada aquí licencia ni guía el tratamiento. case below is fictional and nothing here licenses or guides treatment.
- Las unidades 2.1–2.2 son la maquinaria: proteínas y cinética enzimática.
- Unidades 2.3–2.4 son energía: glucólisis y el motor oxidativo.
- Las unidades 2.5–2.7 son almacenamiento y tráfico: glucógeno, lípidos, nitrógeno.
- La unidad 2.8 integra: estado alimentado, ayuno y diabetes como un solo libro mayor.
La forma de pensar en medicina: mecanismo antes que dato — cada constante enzimática, el recuento de ATP y el flujo de combustible de abajo se recalculan, y cada enlace clínico nombra el paso roto.
Proteínas y estructura proteica
Por qué importa. Enzimas, transportadores, anticuerpos, receptores — casi todo lo que hace una célula, lo hace una proteína. La estructura no es adorno: un nivel se construye sobre el anterior, y cada nivel es un lugar donde una mutación puede causar daño.
La idea, con una imagen. Cuatro niveles: primario (la secundaria ($\alpha$-hélice, $\beta$-lámina, sostenida por puentes de hidrógeno del esqueleto), terciaria (la estructura completa 3D plegamiento, núcleo hidrofóbico), cuaternario (ensamblaje de subunidades).

Definiciones con números. 20 aminoácidos; enlace peptídico ~1.33 Å. La proteína de referencia es la hemoglobina (Hb): 4 subunidades ($\alpha_{2}\beta_{2}$), 4 grupos hemo, 64.5 kDa, una O₂ cada uno — hasta 4 O₂ por molécula.
La derivación (cooperatividad). La mioglobina une O₂ con una simple hipérbola; la hemoglobina une con una sigmoidal S porque cada O₂ unido desplaza las subunidades del estado de baja afinidad T al estado R de alta afinidad — el enlace favorece al enlace: cooperatividad. El coeficiente de Hill Hill $n_H \approx 2.8$ (máximo 4) indica "casi totalmente cooperativo". La ventaja beneficio: carga completa en los pulmones ($pO_{2} \approx 100$ mmHg), aproximadamente 25 % descarga en tejidos en reposo ($pO_{2} \approx 40$ mmHg) y más del 60 % en músculo en trabajo ($\approx 20$ mmHg), porque la parte media empinada de la curva sigmoidea se sitúa exactamente en ese rango.
Ejemplo resuelto 1 — la aritmética de la carga. La sangre transporta ~15 g Hb/dL; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL ×4 sites = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL por mmol) — el valor teórico de 1.39 mL O₂ por g Hb. La cifra medida es 1.34 mL/g, 20.1 mL O₂/dL ✓, ligeramente menor porque algo de hemoglobina está en formas que no pueden transportar O₂.
Worked example 2 — clinical link: one charged bead. (Fictional ficticio) HbS: un Glu→Val en la posición 6 de la cadena β convierte un parche superficial cargado en hidrofóbico; en el estado T desoxi se acopla a un bolsillo en un vecino, polimerizando la Hb y encorvando la célula. Estructura primaria, una perla, cambio en el comportamiento cuaternario — y vaso-oclusión sigue. La enfermedad falciforme es una enfermedad de estructura primaria con consecuencias cuaternarias.
Errores comunes. Leer "desnaturalización" como ruptura de enlaces peptídicos (se despliega el plegamiento; la secuencia sobrevive). Tratar todas las mutaciones como igualmente severas (los cambios conservadores en superficie pueden ser silenciosos; los del núcleo o del sitio activo no lo son). Olvidar los ligandos de la Hb (H⁺, CO₂, 2,3-BPG todos desplazan la curva — la fisiología depende de esos desplazamientos).
Resumen. Secuencia → plegamiento → 3D → ensamblaje; la Hb es el tetrámero de referencia con unión sigmoidea y cooperativa ($n_H \approx 2.8$); un solo cuento (Glu6Val) puede reconfigurar el comportamiento cuaternario.
Enzimas y cinética enzimática
Por qué importa. Casi cada diagnóstico en un panel sanguíneo es una actividad enzimática; casi todo fármaco es un inhibidor enzimático. La cinética es la forma en que la bioquímica se vuelve medible — y cómo leerás los resultados de laboratorio.
La idea, con una imagen. Una enzima reduce la barrera de activación y permanece inalterada tras su uso. La curva de velocidad es Michaelis–Menten: $v = \frac{V_{max}[S]}{K_m + [S]}$, donde $K_m$ es la concentración de sustrato a VELOCIDAD SEMI-MÁXIMA.

La derivación (por qué ocurre la saturación). E + S ⇌ ES → E + P: a baja $[S]$, casi toda E está libre, por lo tanto $v \approx (V_{max}/K_m)\cdot[S]$ — primer orden en S. A altas $[S]$, toda E está en ES: $v$ se aproxima $V_{max}$ — orden cero. La línea de doble recíproco (Lineweaver–Burk) $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ convierte la hipérbola en una línea recta: intersección y $1/V_{max}$, intersección x $-1/K_m$.
Ejemplo resuelto 1 — lectura de datos. Una enzima produce $v = 33$ µmol/min a $[S] = 1$ mM y $v = 60$ a $[S] = 4$ mM. Escriba $v = V[S]/(K+[S])$ dos veces y divida: $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓. Verifique el punto medio: a $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
Ejemplo resuelto 2 — vínculo clínico: el bloqueador competitivo. (Paciente ficticio con un inhibidor tipo estatina) un fármaco imita al sustrato y ocupa el sitio activo (inhibición competitiva ): la aparente $K_m$ aumenta, $V_{max}$ sin cambios — superable con más sustrato, y las líneas L-B se intersectan EN el eje y. La unión no competitiva en otro lugar reduce $V_{max}$ y deja $K_m$ intacto (las líneas se encuentran EN el eje x). Leer cuál línea se movió es el mecanismo.
Errores comunes. Llamar a $K_m$ una afinidad (es una concentración; pequeño $K_m$ significa por casualidad alta afinidad aparente). Ajustar dos puntos en su mente sin verificar un tercero. Esperar que los inhibidores cambien la CANTIDAD de enzima (la inducción sí; los inhibidores cambian la actividad).
Resumen. $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ a media-$V_{max}$; competitivo: $K_m$↑ $V_{max}$ igual; no competitivo: $V_{max}$↓ $K_m$ igual; las intersecciones en el eje L-B identifican cuál.
Bioenergética y glucólisis
Por qué es importante. Las células pagan todo en ATP, y la moneda de cambio es exacta: las reacciones acopladas solo proceden hacia abajo en energía libre. La glucólisis es la forma más antigua y mejor conservada de producir ATP — y el ancla metabólica de cada unidad posterior.
La idea, con una imagen. Acoplamiento: una reacción desfavorable ocurre solo cuando se une a una favorable ($\Delta G$ añade). La glucólisis divide una glucosa (6 C) en dos piruvatos (3 C): inversión (2 ATP gastados), fase de pago (4 ATP + 2 NADH producidos), neto 2 ATP + 2 NADH ✓ — independiente del oxígeno.

Definiciones con números. Los tres pasos esencialmente irreversibles ($\Delta G^{\circ\prime}$ muy negativo): hexocinasa (−16.7 kJ/mol), PFK-1 (−14.2, el paso COMPROMETIDO y principal control), pyruvate kinase (−31.4). Without O₂, NAD⁺ is regenerated by lactato deshidrogenasa: piruvato + NADH → lactato (fermentación).
La derivación (por qué PFK-1 es la puerta de control). La teoría del control indica: puerta el primer paso comprometido e irreversible. La hexocinasa está precomprometida (otros azúcares la usan); la piruvato quinasa llega tarde (la inversión ya se realizó). La PFK-1 es el primer paso único de la glucólisis — por lo tanto, AMP y ADP la activan; ATP y citrato la inhiben; fructosa-2,6- bisfosfato (señal de insulina) la activa con gran fuerza. Una sola enzima monitorea el estado energético completo de la célula.
Ejemplo resuelto 1 — el balance de ATP. Por glucosa: −2 (inversión) +4 (recuperación) = neto 2 ATP; más 2 NADH (citosólico — equivale a 5 ATP vía la máquina malato o 3 vía glicerol fosfato, unidad 2.4). En condiciones anaeróbicas los 2 NADH se consumen re-reduciendo la piruvato a lactato: el rendimiento anaeróbico es exactamente 2 ATP ✓.
Ejemplo resuelto 2 — vínculo clínico: la puerta que no se abre. (Paciente ficticio) calambres musculares en segundos tras un sprint, sin aumento de lactato sanguíneo: la fosforilasa muscular funciona (el glucógeno se degrada), pero PFK-1 es deficiente: las fosfatos de azúcar se acumulan antes del umbral, la recuperación nunca llega, el ATP cae y la mioglobina se libera. Un solo umbral, un solo síndrome de esfuerzo: el paso regulado es el locus de la enfermedad.
Errores comunes. Contar ATP bruto cuando se pide neto. Ubicar la regulación en pasos reversibles (la regulación reside en los irreversibles) (puertas). La regeneración anaeróbica del NAD⁺ es la RAZÓN por la que se forma lactato (no un producto de desecho — una necesidad redox).
Resumen. Glucosa → 2 piruvato, neta 2 ATP + 2 NADH, tres puertas irreversibles con PFK-1 comprometida; AMP/ADP enciende, ATP/citrato apaga; el lactato compra NAD⁺ cuando falta O₂.
Ciclo TCA y fosforilación oxidativa
Por qué importa. El oxígeno existe para una sola función en el cuerpo: aceptar electrones al final de la cadena de transporte. El ciclo TCA convierte unidades acetilo en esos electrones, y la ATP sintasa convierte su caída en ~90 % del ATP corporal. Esta unidad es donde el metabolismo energético se vuelve cuantitativo.
La idea, con una imagen. El ciclo TCA (Krebs): acetil-CoA (2 C) + oxaloacetato (4 C) → citrato (6 C) → dos descarbox- ilaciones regresan al oxaloacetato, produciendo por acetilo: 3 NADH, 1 FADH₂, 1 GTP. La cadena de transporte de electrones (membrana mitocondrial interna): complejos I, III, IV bombean H⁺ hacia afuera; el flujo de retorno a través de la ATP sintasa produce ATP.
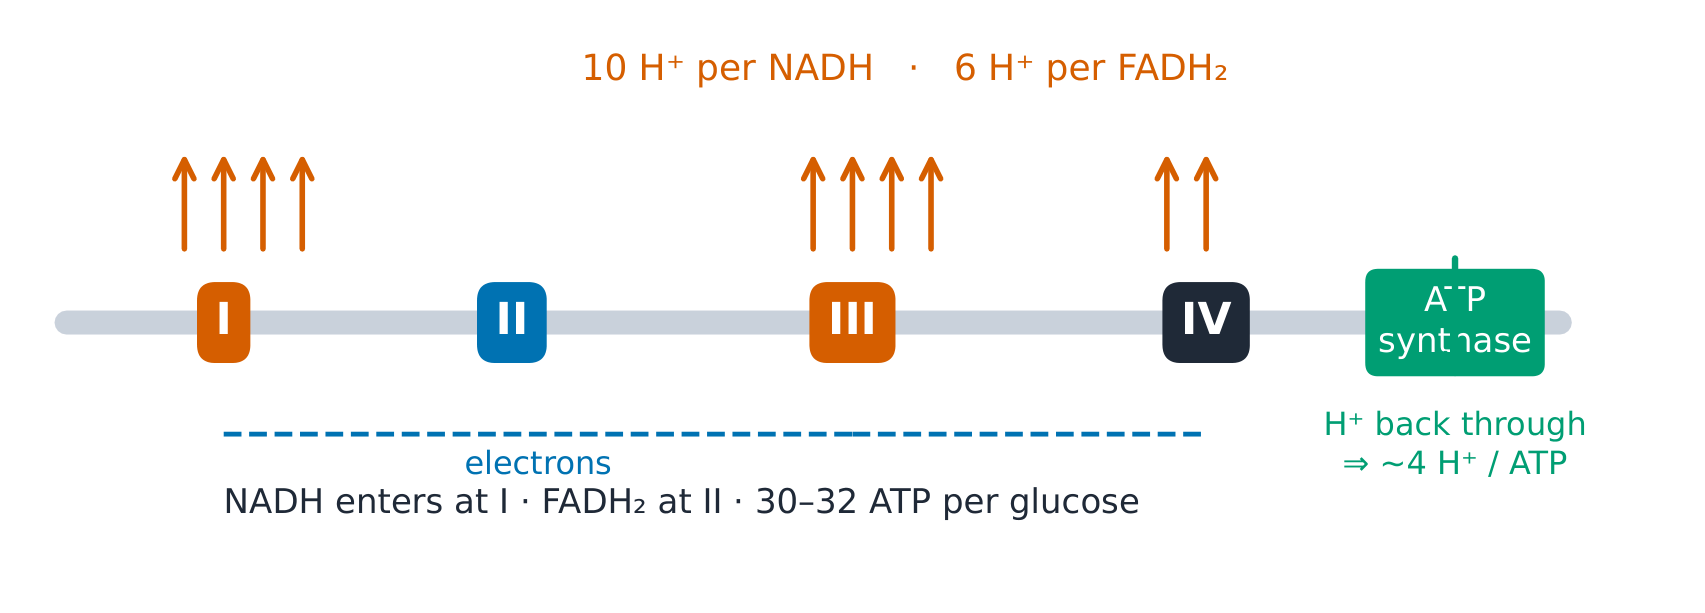
La derivación (la cuenta moderna de ATP). Por NADH: complejos I+III+IV Bomba 4+4+2 = 10 H⁺; según FADH₂ (entrada en II): III+IV = 6 H⁺. La ATP sintasa necesita ~3 H⁺/ATP más 1 H⁺ para importar Pi: 4 H⁺/ATP. Por lo NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — y según glucosa, contando todos los transportadores: 2 (ATP de la glucólisis) + 2×2.5 (su NADH, shuttle del malato) + 2×2.5 (NADH de la deshidrogenasa de piruvato) + 2 GTP + 6×2.5 (NADH del TCA) + 2×1.5 = 32 ATP con el shuttle del malato, 30 con glicerol fosfato (el antiguo "36–38" usaba el P/O redondeado de 3 y 2).
Ejemplo resuelto 1 — aritmética de acetilo. Una glucosa → 2 piruvato → 2 acetil-CoA (2 NADH procedente de la deshidrogenasa de piruvato). Con la deshidrogenasa de piruvato, dos vueltas del TCA más la entrada producen 2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 equivalentes de ATP — tres cuartas partes del presupuesto aeróbico total (25 de 32), todo proveniente de pares de electrones destinados al O₂.
Ejemplo resuelto 2 — vínculo clínico: la turbina bloqueada. (Vignette ficticia de sobredosis) colapso con sangre venosa rojo brillante: el cianuro se une al complejo IV, los electrones no pueden llegar al O₂, las bombas se detienen, el gradiente colapsa y la ATP sintasa se detiene (incluso puede funcionar a la inversa, consumiendo ATP). La química explica el signos: los tejidos no pueden extraer O₂ (la sangre venosa permanece roja), la lactato se dispara (solo persiste la glucólisis). Existen tratamientos para sortear o superar el bloqueo — mecanismo primero, antídoto segundo.
Errores comunes. Decir que el ciclo "produce ATP" directamente (produce GTP + portadores reducidos; la cadena produce el gradiente). Contar CO₂ como de "los carbonos acetilo de esta vuelta" (se liberan en vueltas posteriores — el ciclo mezcla sus carbonos). Usar P/O 3 y 2 sin especificar qué convención.
Resumen. Acetil → 3 NADH + 1 FADH₂ + 1 GTP por vuelta; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP por glucosa (cuenta moderna, dependiente del transportador); el complejo IV es donde el oxígeno cumple su función.
Glucógeno y gluconeogénesis
Por qué importa. El cerebro consume ~120 g de glucosa al día y no almacena ninguna. Entre comidas, el cuerpo depende de dos reservas de glucosa con diferentes propietarios — y durante el ayuno debe sintetizar glucosa desde cero.
La idea, con una imagen. Glucógeno: polímero ramificado de glucosa ($\alpha 1\to4$ cadenas, $\alpha 1\to6$ ramificación cada ~8–12 residuos). El hígado almacena ~100 g — EXPORTA glucosa a la sangre; el músculo almacena ~400 g — la retiene, la quema localmente.

Definiciones con números. La fosforilasa del glucógeno escinde $\alpha1\to4$ (fosforólisis, sin gasto de ATP); la enzima desramificadora maneja los stubs de $\alpha1\to6$. Gluconeogénesis invierte glucólisis cuesta arriba alrededor de sus tres puntos de control — a costa de 4 ATP + 2 GTP
- 2 NADH por glucosa (6 fosfatos de alta energía, vs ganancia neta de glucólisis de 2).
Derivación (por qué dos bancos). El músculo carece de glucosa-6-fosfatasa: su glucosa-6-P está atrapada y alimenta la glucólisis — no puede exportar lo que no puede desfosforilar. El hígado SÍ tiene la fosfatasa: glucógeno → glucosa-1-P → glucosa-6-P → glucosa libre → sangre. Una sola enzima presencia o ausencia asigna el rol del órgano; las hormonas la regulan — glucagón (solo hígado) desencadena degradación, insulina desencadena síntesis.
Ejemplo resuelto 1 — presupuesto nocturno. Glucógeno hepático ~100 g ≈ 400 kcal; el cerebro necesita ~120 g/día ≈ 480 kcal/día. El banco cubre aproximadamente un día de uso cerebral ✓ — tras 12–24 h de ayuno, gluconeogénesis debe hacerse cargo (aminoácidos del músculo, glicerol de grasa, lactato vía ciclo de Cori).
Ejemplo resuelto 2 — vínculo clínico: el corredor que no puede acceder al banco. (Ficción) calambres y orina oscura tras sprint: musculatura fosforilasa deficiente (patrón de McArdle) — glucógeno almacenado pero inaccesible, ATP disminuye, miosglobina se filtra y la lactata esperada nunca aumenta. El laboratorio ES el mecanismo: ausencia de lactato con esfuerzo máximo localiza la ruptura antes de la puerta glucolítica.
Errores comunes. Tratar los dos depósitos de glucógeno como uno (glucógeno muscular nunca se convierte en glucosa sanguínea). Contar la gluconeogénesis como "glucólisis a la inversa gratis" (cuesta 6 fosfatos de alta energía). Ubicar receptores de glucagón en el músculo (no existen).
Resumen. Hígado ~100 g exporta (tiene la fosfatasa); músculo ~400 g mantiene (le falta); la fosforilasa + desramificante rompen, sintasa + enzima ramificadora construyen; glucagón/insulina establecen la señal; gluconeogénesis cuesta 4 ATP + 2 GTP + 2 NADH por glucosa.
Metabolismo lipídico
Por qué es importante. La grasa es el almacén energético a largo plazo del cuerpo —y su mayor problema de tráfico: insoluble en agua, los lípidos necesitan una flota de transporte cuyos fallos son la enfermedad más común del mundo.
La idea, con una imagen. β-oxidación β en mitocondria: cada ciclo recorta 2 C de un acil-CoA graso, generando 1 acetil-CoA + 1 FADH₂ + 1 NADH. Transporte: lipoproteínas — quilomicrones (intestino → tejidos), VLDL (hígado → tejidos), LDL (colesterol hacia tejidos —el portador "malo"), HDL (colesterol de vuelta al hígado —el "bueno").

La derivación (el recuento de palmitato). Palmitato (C16): $\beta$- la oxidación necesita $(16/2) - 1 = 7$ ciclos → 8 acetil-CoA + 7 FADH₂ + 7 NADH. Rendimiento: cada acetilo vale 10 equivalentes a través del ciclo ($3\times2.5 + 1.5 + 1$), por lo que 8 acetilo da 80; los 7 FADH₂ dan $7\times1.5 = 10.5$ y los 7 NADH dan $7\times2.5 = 17.5$; menos 2 por activación: 106 ATP por palmitato ✓ — frente a 30–32 por glucosa: la grasa paga varios veces más por carbono, porque está casi totalmente reducida.
Ejemplo resuelto 1 — cetonas, el combustible del cerebro. Ayuno prolongado: la acetil-CoA de la β-oxidación supera al ciclo TCA (OAA desviada a gluconeogénesis), por lo que el hígado la condensa en cuerpos cetónicos (acetoacetato, β-hidroxibutirato) y los exporta — solubles en agua, cruce al cerebro, valen ~21.5 ATP por β-hidroxibutirato. Al día 3 las cetonas suministran aproximadamente un tercio de la energía cerebral, y después de varias semanas hasta dos tercios, ahorrando proteína muscular ✓.
Ejemplo resuelto 2 — vínculo clínico: el motor sin chispa. (Infante ficticio) hipoglucemia hipocetónica por ayuno: una acil-CoA deshidrogenasa es deficiente, la β-oxidación se detiene, no se pueden formar cetonas Y NO hay ATP para impulsar la gluconeogénesis — el doble fallo explica AMBOS hallazgos de laboratorio. La firma diagnóstica (glucosa baja CON cetonas bajas) es el mecanismo medido en una gota de sangre.
Errores comunes. Olvidar el costo de activación (−2 equivalentes) en el recuento de ATP. Esperar que el cerebro queme ácidos grasos de cadena larga (no oxida muy poca grasa (las cetonas son su sustituto). Llamar LDL "colesterol" (es la partícula CARRERA).
Resumen. β-oxidación: C16 → 8 acetil-CoA + 7×(FADH₂+NADH) → 106 ATP neto; quilomicrones/VLDL salen, LDL entregan, HDL regresan; el ayuno convierte al hígado en exportador de cetonas.
Metabolismo del nitrógeno y ciclo de la urea
Por qué importa. El nitrógeno no se puede almacenar: cada aminoácido que no se necesite hoy debe desaminarse hoy, y el amoníaco liberado es neurotóxico a concentraciones micromolares. Su eliminación no es opcional — es una banda transportadora de cinco pasos a través de dos compartimentos.
La idea, con un dibujo. Los grupos amino convergen hacia la glutamato (transaminación: aminoácido + α-cetoglutarato ⇌ ácido cetona + glutamato), luego la desaminación oxidativa libera NH₃ en la mitocondria hepática. El ciclo de la urea transcurre entre mitocondria y citosol: NH₃ + CO₂ → fosfato carbamoil → citrulina → (citosol) argininosuccinato → arginina → urea + ornitina regenerada. succinato → arginina → urea + ornitina regenerada.

Definiciones con números. Urea: 2 N por molécula (uno de NH₃, uno de aspartato), costo 3 ATP (4 enlaces de alta energía) por urea. La amoníaco sanguíneo normal es solo ~10–35 µmol/L — nivel estricto, porque el cerebro no tiene ciclo de la urea.
La derivación (por qué el hígado, por qué ahí). La desintoxicación del amoníaco debe situarse antes de la circulación sistémica: la sangre portal del tracto gastrointestinal drena directamente al hígado, que extrae aminoácidos y amoníaco en el primer paso. El cerebro y el músculo no pueden asumir el costo del ciclo — exportan nitrógeno como glutamina (el taxi del amoníaco) y alanina (el taxi de carbono y nitrógeno) para que el hígado lo procese. La ubicación ES el sistema de seguridad. proceso. La ubicación ES el sistema de seguridad.
Ejemplo resuelto 1 — el libro diario. Una dieta típica turna ~70–100 g proteína/día ≈ 11–16 g N; excretado casi exclusivamente como urea (25–35 g/día). Verificación cruzada: cada urea transporta 2 N (28 g de 60 g molécula = 47 % N en masa): 30 g urea × 0.47 ≈ 14 g N ✓ — la orina coincide con la dieta.
Ejemplo resuelto 2 — enlace clínico: la banda transportadora bloqueada. (Lactante ficticio) letargo seguido de coma después de las primeras tomas, amoníaco elevadísimo, ácido orótico en orina: deficiencia de ornitina transcarbamoilasa — el ciclo se bloquea en el paso 2, la fosfocarbamoilo se desvía hacia la síntesis de pirimidinas (de ahí el orotato). La gestión basada en el mecanismo sigue al bloqueo: limitar la ingesta de nitrógeno, eliminar el amoníaco y suplementar las rutas alternativas — la bioquímica dicta el protocolo. bloqueo: limitar la ingesta de nitrógeno, secuestrar el amoníaco, alimentar las alternativas — la bioquímica escribe el protocolo.
Resumen. La transaminación canaliza el N hacia el glutamato; el ciclo hepático nitrógenos: NH₃ y el grupo amino del aspartato). Esperando ciclo de la urea la glutamina y la alanina son los vehículos de transporte; la hiperamonemia con orotato sugiere OTC. Olvidar el costo de ATP (la eliminación de nitrógeno es costosa: 4 enlaces).
Por qué importa. El metabolismo es un sistema único con un interruptor. La insulina y el glucagón son la palanca, los órganos son los engranajes, y la diabetes es el interruptor atascado — la integración más instructiva en medicina. (2 compartimentos, 5 enzimas) construye urea a 3 ATP cada una, exportando 2 N; glucosa hacia todas las células, depósitos de glucógeno llenos, exceso de carbono hacia grasa. Ayuno (glucagón alto): glucogenólisis hepática (horas) →
Integración del metabolismo: estado alimentado, ayuno y diabetes
Por qué importa. El metabolismo es un sistema con un interruptor. La insulina y el glucagón son la palanca, los órganos son los engranajes, y la diabetes es el interruptor atascado — la integración más instructiva en medicina.
La idea, con una imagen. Estado posprandial (insulina alta): glucosa a todas las células, glucógeno lleno, carbono extra a grasa. Estado de ayuno (glucagón alto): glucogenólisis hepática (horas) → gluconeogénesis (días) → cetogénesis (el cerebro se adapta). Un solo libro de cuentas de combustible, tres regímenes temporales.

Definiciones con números. Cerebro ~120 g de glucosa/día. Glucógeno hepático ~100 g (~por día). Las cetonas cubren aproximadamente un tercio de la energía cerebral para el día 3 de un ayuno, y hasta dos tercios después de varias semanas. Ancla diagnóstica: HbA1c ≥ 6.5 % indica diabetes — la glicosilación de la hemoglobina se acumula a lo largo de la vida de los eritrocitos de ~120 días, integrando la glucosa como una grabadora.
La derivación (la lógica del cambio). Una sola variable: ¿llega alimento? — debe establecer coherentemente las flechas de TODOS los órganos. Un par hormonal con acciones opuestas sobre las mismas enzimas (PFK-2, sintasa de glucógeno, fosforilasa, lipasa) logran esto: el glucagón eleva el cAMP, por lo que PKA los fosforila; la insulina reduce el cAMP (fosfodiesterasa activa) y activa fosfatases, por lo que las mismas enzimas pierden sus fosfatos. La elegancia radica en que UNO señal, no siete, mantiene a 4 órganos trabajando sin propósitos contradictorios — y la diabetes muestra cuánto cuesta trabajar con propósitos contradictorios.
Ejemplo resuelto 1 — la línea temporal de un ayuno. Hora 0 (termina la comida): desciende la glucosa. Horas 0–4: se usan los nutrientes absorbidos, disminuye la insulina. Horas 4–12: se agota el glucógeno hepático. Horas 12–24: banco vacío, aumenta la gluconeogénesis (aminoácidos musculares, glicerol, lactato). Días 1–3: proteína ahorro de proteínas comienza al aumentar las cetonas. Día 3: aproximadamente un tercio de la energía cerebral proveniente de cetonas; semanas: hasta dos tercios ✓ — cada transición es el mecanismo de la unidad anterior, cronometrado.
Ejemplo resuelto 2 — enlace clínico: el interruptor atascado, en ambas direcciones. (Paciente ficticio) tipo 1 imagen: sin insulina, por lo que a pesar de la alta glucosa las células leen AYUNO → se libera grasa, las cetonas inundan (acidosis, respiración de Kussmaul como compensación pulmonar), los músculos se degradan, la orina pierde glucosa y agua (diuresis osmótica, sed). Cada síntoma es un solo interruptor leído por cuatro órganos. Tipo 2 imagen: insulina presente pero resistida → los mismos libros contables, flechas más tenues, años en lugar de horas.
Errores comunes. Interpretar la insulina solo como "reduce la glucosa" (establece la dirección de TODOS los sustratos). Tratar la necesidad cerebral de glucosa como negociable (las cetonas solo sustituyen parcialmente y tardan días). Confundir HbA1c (promedio de 3 meses) con una lectura de glucosa (minutos).
Resumen. Insulina/glucagón = una palanca en todos los órganos; alimentado → almacenamiento, ayuno → glucogenólisis → gluconeogénesis → cetonas en un reloj de ~24 h / 3 día reloj; HbA1c ≥ 6.5 % integra la cinta; la cetoacidosis diabética es — el mapa del cuerpo. Todo curso clínico posterior lee este