Apa kursus ini, dan bagaimana menggunakannya
Ini adalah kursus kedua dalam Kedokteran Universitas: bio kimia medis. MED01 membangun sel; kursus ini mengisinya — molekul, enzim, dan aliran bahan bakar yang menjaga tubuh manusia tetap berfungsi, dan kimia yang dibaca kedokteran klinis setiap hari.
Batasan ruang lingkup, dinyatakan sekali: kursus studi, bukan gelar kedokteran; setiap kasus di bawah ini fiktif dan tidak ada di sini yang memberikan lisensi atau panduan untuk perawatan.
- Unit 2.1–2.2 adalah mesin: protein dan kinetika enzim.
- Unit 2.3–2.4 adalah energi: glikolisis dan mesin oksidatif.
- Unit 2.5–2.7 adalah penyimpanan dan lalu lintas: glikogen, lipid, nitrogen.
- Unit 2.8 mengintegrasikan: makan, puasa, dan diabetes sebagai satu buku besar.
Kebiasaan kedokteran: mekanisme sebelum fakta — setiap konstanta enzim, jumlah ATP dan aliran bahan bakar di bawah ini adalah sesuatu yang Anda hitung ulang, dan setiap kait klinis menyebutkan langkah yang rusak.
Protein dan struktur protein
Mengapa ini penting. Enzim, transporter, antibodi, reseptor — hampir semua yang dilakukan sel, dilakukan oleh protein. Struktur bukan hiasan: satu tingkat membangun tingkat sebelumnya, dan setiap tingkat adalah tempat di mana mutasi dapat merusak.
Konsepnya, dengan gambar. Empat tingkat: primer (urutan asam amino, dibaca N→C), sekunder (heliks $\alpha$, lembaran $\beta$, diikat oleh ikatan H tulang belakang), tersier (struktur lengkap Urutan, lipatan, bentuk 3D, perakitan — setiap tingkat adalah tempat mutasi dapat merusak
 referensi adalah hemoglobin (Hb): 3 subunit
Definisi dengan angka. 20 asam amino; ikatan peptida ~1.33 Å. Protein referensi adalah hemoglobin (Hb): 4 subunit ($\alpha_{2}\beta_{2}$), 4 gugus heme, 64.5 kDa, satu O₂ per subunit — hingga 4 O₂ per molekul.
Penurunan (kooperativitas). Myoglobin mengikat O₂ dengan kurva hiperbola sederhana; hemoglobin mengikat dengan bentuk S sigmoid karena setiap keadaan afinitas tinggi R — pengikatan membantu pengikatan: kooperativitas. Koefisien Hill pembuangan di jaringan (₂ mmHg). keadaan R afinitas tinggi — pengikatan membantu pengikatan: kooperativitas. Koefisien Hill pengisian penuh di paru-paru ($n_H \approx 2.8$ mmHg), sekitar 4 % pembongkaran di jaringan istirahat ($pO_{2} \approx 100$ mmHg) dan lebih dari 25 % di pembongkaran di jaringan istirahat ($pO_{2} \approx 40$ mmHg) dan lebih dari 60 % pada otot yang bekerja ($\approx 20$ mmHg), karena bagian tengah kurva sigmoid yang curam kurva sigmoid berada tepat di dalam rentang tersebut.
Contoh terkerja 1 — aritmatika pengisian. Darah membawa ~15 g Hb/dL; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL ×4 situs = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL per mmol) — teoritisnya 1.39 mL O₂ per g Hb. Nilai ukurannya adalah 1.34 mL/g, 20.1 mL O₂/dL ✓, sedikit lebih rendah karena sebagian hemoglobin berada dalam bentuk yang tidak dapat mengikat O₂.
Contoh terarah 2 — kaitan klinis: satu mutasi bermuatan. (Pasien hipotetis) HbS: satu Glu→Val pada posisi 6 rantai β mengubah muatan konsekuensi kuaterner. Kesalahan umum. Membaca "denaturasi" sebagai pemutusan ikatan peptida (hal ini membuka lipatan; urutan tetap utuh). Memperlakukan semua mutasi sebagai sama beratnya (perubahan konservatif pada permukaan bisa menjadi sunyi; inti atau konsekuensi kuaterner.
menggeser kurva — fisiologi hidup dari pergeseran tersebut). (memperjelas lipatan; urutan tetap utuh). Memperlakukan semua mutasi sebagai setara beratnya (perubahan konservatif permukaan bisa diam; inti atau situs aktif tidak bisa). Mengabaikan ligan Hb (H⁺, CO₂, 2,3-BPG semuanya menggeser kurva — fisiologi bergantung pada pergeseran tersebut).
Ringkasan. Urutan → lipatan → 3D → perakitan; Hb adalah referensi tetramer dengan ikatan kooperatif sigmoid ($n_H \approx 2.8$); satu mutasi (Glu6Val) dapat memprogram ulang perilaku kuaterner.
Enzim dan kinetika enzim
Mengapa ini penting. Hampir setiap diagnosis pada panel darah adalah aktivitas enzim; hampir semua obat adalah inhibitor enzim. Kinetika adalah cara biokimia menjadi terukur—dan bagaimana Anda membaca hasil laboratorium.
Konsep, dengan gambar. Enzim menurunkan penghalang aktivasi dan tidak berubah setelah digunakan. Kurva laju mengikuti model Michaelis–Menten: $v = \frac{V_{max}[S]}{K_m + [S]}$, di mana $K_m$ adalah konsentrasi substrat pada kecepatan setengah maksimal.

Penurunan (mengapa terjadi saturasi). E + S ⇌ ES → E + P: pada konsentrasi rendah $[S]$, hampir seluruh E bebas, sehingga $v \approx (V_{max}/K_m)\cdot[S]$ — orde pertama terhadap S. Pada konsentrasi tinggi $[S]$, setiap E berada dalam kompleks ES: $v$ mendekati $V_{max}$ — orde nol. Garis resiprokal ganda (Lineweaver–Burk) $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ mengubah hiperbola menjadi garis lurus: titik potong sumbu-y $1/V_{max}$, titik potong sumbu-x $-1/K_m$.
Contoh terpecahkan 1 — membaca data. Enzim menghasilkan $v = 33$ µmol/menit pada konsentrasi $[S] = 1$ mM dan $v = 60$ pada konsentrasi $[S] = 4$ mM. Tuliskan $v = V[S]/(K+[S])$ dua kali lalu bagi: $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓. Cek titik setengah: pada $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
Contoh terpecahkan 2 — tautan klinis: penghambat kompetitif. (Pasien fiktif pada inhibitor mirip statin) obat meniru substrat dan menempati situs aktif (inhibisi kompetitif ): $K_m$ tampak meningkat, $V_{max}$ tidak berubah — dapat diatasi dengan lebih banyak substrat, dan garis L-B berpotongan DI sumbu-y. Ikatan non-kompetitif di tempat lain menurunkan $V_{max}$ dan meninggalkan $K_m$ tak berubah (garis bertemu DI sumbu-x). Membaca garis mana yang bergeser adalah mekanisme.
Kesalahan umum. Menyamakan $K_m$ dengan afinitas (ini adalah konsentrasi; $K_m$ kecil kebetulan berarti afinitas tampak tinggi). Mencocokkan dua titik di kepala tanpa memeriksa titik ketiga. Mengharapkan penghambat mengubah JUMLAH enzim (induksi melakukan; penghambat mengubah aktivitas).
Ringkasan. $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ pada setengah-$V_{max}$; kompetitif: $K_m$↑ $V_{max}$ sama; non-kompetitif: $V_{max}$↓ $K_m$ sama; intersep L-B mengidentifikasi mana.
Bioenergetika dan glikolisis
Mengapa ini penting. Sel membayar untuk segalanya dalam ATP, dan mata uang tukarannya akurat: reaksi berpasangan hanya berlangsung turun secara bebas energi. Glikolisis adalah cara tertua dan paling terkonservasi untuk membuat ATP — dan jangkar metabolik dari setiap unit selanjutnya.
Gagasan, dengan gambar. Penggabungan: reaksi yang tidak menguntungkan berjalan hanya ketika terikat pada yang menguntungkan ($\Delta G$ menambah). Glukolisis memecah satu glukosa (6 C) menjadi dua piruvat (3 C): fase investasi (2 ATP dihabiskan), fase pengembalian (4 ATP + 2 NADH terbentuk), bersih 2 ATP + 2 NADH ✓ — tidak bergantung pada oksigen.

Definisi dengan angka. Tiga langkah yang pada dasarnya ireversibel ($\Delta G^{\circ\prime}$ sangat negatif): heksokinase (−16.7 kJ/mol), PFK-1 (−14.2, langkah KOMITMEN dan kontrol utama kontrol), piruvat kinase (−31.4). Tanpa O₂, NAD⁺ diregenerasi oleh laktat dehidrogenase: piruvat + NADH → laktat (fermentasi).
Penurunan (mengapa PFK-1 adalah gerbang). Teori kendali menyatakan: gerbang langkah komitmen pertama yang ireversibel. Heksokinase sudah berkomitmen sebelumnya (gula lain menggunakannya); piruvat kinase terlambat (investasi sudah terlalu jauh dilakukan). PFK-1 adalah langkah pertama yang unik untuk glukolisis — sehingga AMP dan ADP mengaktifkannya; ATP dan sitrat menghambatnya; fruktosa-2,6- bisfosfat (sinyal insulin) mengaktifkannya dengan kuat. Satu enzim melihat keseluruhan kondisi energi sel.
Contoh worked 1 — buku besar ATP. Per glukosa: −2 (investasi) +4 (hasil) = neto 2 ATP; ditambah 2 NADH (sitosolik — bernilai 5 ATP melalui malate shuttle atau 3 melalui gliserol fosfat, unit 2.4). Secara anaerobik NADH 2 dikonsumsi untuk mereduksi kembali piruvat menjadi laktat: hasil anaerobik tepatnya 2 ATP ✓.
Contoh terpecahkan 2 — tautan klinis: gerbang yang tak bisa terbuka. (Pasien fiksi) kram otot dalam hitungan detik setelah lari sprint, tidak ada kenaikan laktat darah: fosforilase otot bekerja (glikogen terurai) tetapi PFK-1 kurang aktivitas — fosfat gula menumpuk sebelum gerbang, yang penghasilan energi tidak pernah datang, ATP turun dan mioglobin bocor. Satu gerbang, satu sindrom olahraga: langkah yang terregulasi adalah lokus penyakit.
Kesalahan umum. Menghitung ATP kotor di mana ditanya neto. Menempatkan regulasi pada langkah reversibel (regulasi berada pada langkah irreversible gerbang). Melupakan regenerasi NAD⁺ anaerobik adalah ALASAN laktat terbentuk (bukan produk limbah — kebutuhan redoks).
Ringkasan. Glukosa → 2 piruvat, neto 2 ATP + 2 NADH, tiga gerbang irreversible dengan PFK-1 berkomitmen; AMP/ADP menyala, ATP/sitrat mati; laktat membeli NAD⁺ ketika O₂ habis.
Siklus TCA dan fosforilasi oksidatif
Mengapa ini penting. Oksigen hanya memiliki satu tugas di tubuh: menerima elektron di akhir rantai transpor. Siklus TCA mengubah unit asetil ke elektron-elektron tersebut, dan ATP sintase mengubah energi mereka menjadi ~90 % dari total ATP tubuh. Unit ini adalah tempat di mana metabolisme energi menjadi kuantitatif.
Konsepnya, dengan gambar. Siklus TCA (Krebs): asetil-CoA (2 C) + oksaloasetat (4 C) → sitrat (6 C) → dua dekarboksilasi kembali ke oksaloasetat, menghasilkan per asetil: 3 NADH, 1 FADH₂, 1 GTP. Rantai transpor elektron (membran mitokondria bagian dalam): kompleks I, III, IV memompa H⁺ keluar; aliran balik melalui ATP sintase menghasilkan ATP.
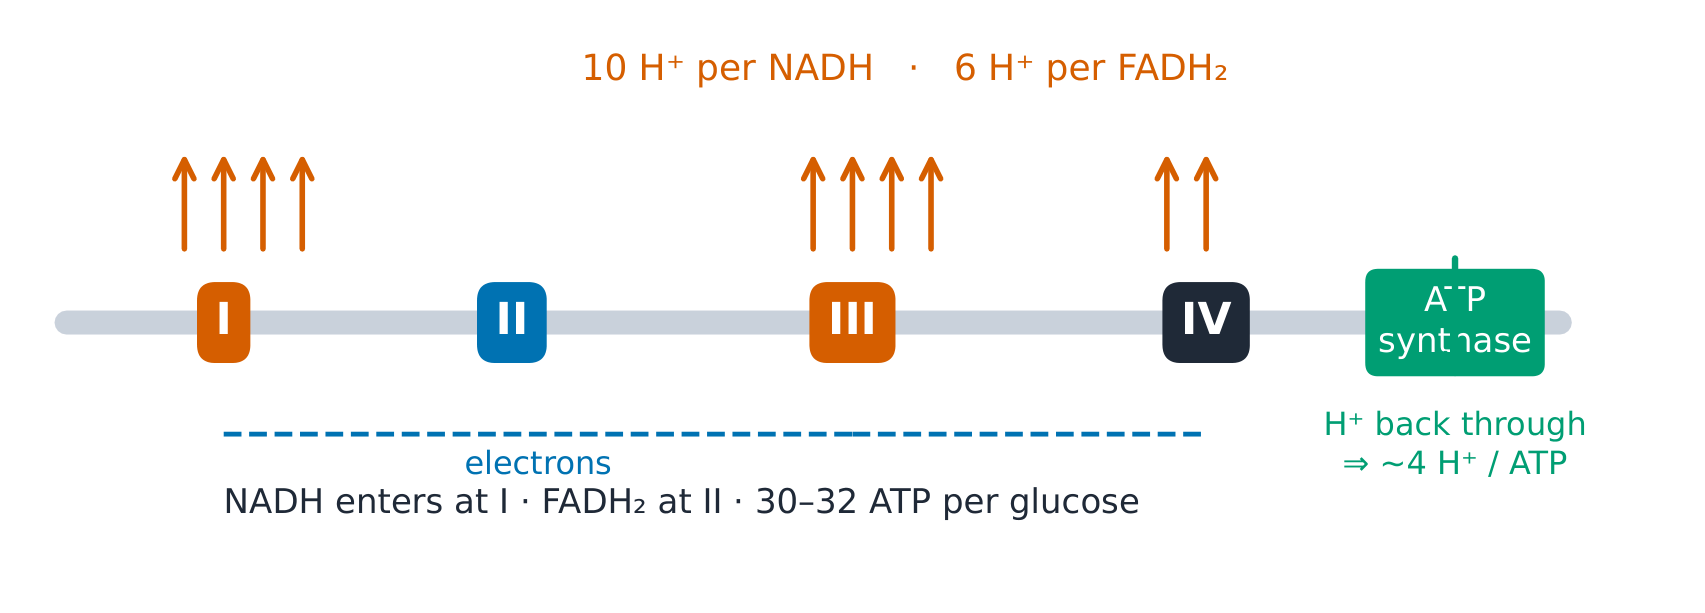
Turunan (jumlah ATP modern). Per NADH: kompleks I+III+IV memompa 4+4+2 = 10 H⁺; per FADH₂ (masuk di II): III+IV = 6 H⁺. ATP sintase membutuhkan ~3 H⁺/ATP ditambah 1 H⁺ untuk mengimpor Pi: 4 H⁺/ATP. Jadi NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — dan per glukosa, menghitung setiap pembawa: 2 (ATP glikolisis) + 2×2.5 (NADH-nya, shuttle malat) + 2×2.5 (NADH dehidrogenase piruvat) + 2 GTP + 6×2.5 (NADH TCA) + 2×1.5 = 32 ATP dengan shuttle malat, 30 dengan gliserol fosfat (pendekatan lama "36–38" menggunakan rasio P/O bulat dari 3 dan 2).
Contoh terpecahkan 1 — aritmatika asetil. Satu glukosa → 2 piruvat → 2 asetil-CoA (2 NADH dari dehidrogenase piruvat). Dengan dehidrogenase piruvat, dua putaran TCA plus masuknya asetil menghasilkan 2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 ekuivalen ATP — tiga perempat dari total anggaran aerobik (25 dari 32), semuanya berasal dari pasangan elektron yang dituju ke O₂.
Contoh terpecahkan 2 — kait klinis: turbin yang tersumbat. (Skenario fiksi overdosis) kolaps dengan darah vena berwarna merah terang: sianida berikatan kompleks IV, elektron tidak dapat mencapai O₂, pemompaan berhenti, gradien runtuh dan sintase ATP berhenti (bahkan dapat berjalan mundur, menghabiskan ATP). Kimia menjelaskan hal ini jaringan tidak dapat mengekstrak O₂ (darah vena tetap merah), laktat melonjak (glikolisis saja masih berlangsung). Ada pengobatan untuk melewati atau mengalahkan hambatan tersebut — mekanisme terlebih dahulu, antidot kedua.
Kesalahan umum. Mengatakan siklus "menghasilkan ATP" secara langsung (siklus ini menghasilkan GTP + pembawa tereduksi; rantai transpor elektron yang membuat gradien). Menghitung CO₂ sebagai dari "karbon asetil pada putaran ini" (karbon tersebut keluar pada putaran SELANJUTNYA — siklus mencampur karbonya). Menggunakan rasio P/O 3 dan 2 tanpa menyebutkan konvensi apakah yang digunakan.
Ringkasan. Asetil → 3 NADH + 1 FADH₂ + 1 GTP per putaran; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP per glukosa (perhitungan modern, bergantung pada shuttle); kompleks IV adalah tempat di mana oksigen mendapatkan hak asasinya.
Glikogen dan glukoneogenesis
Mengapa ini penting. Otak membakar ~120 g glukosa per hari dan tidak menyimpan cadangan. Antara makan, tubuh bergantung pada dua bank glukosa dengan pemilik berbeda — dan saat puasa, tubuh harus membuat glukosa dari nol. pemiliknya — dan saat puasa harus membuat glukosa dari nol.
Gagasan, dengan gambar. Glikogen: polimer glukosa bercabang polimer ($\alpha 1\to4$ rantai, $\alpha 1\to6$ cabang setiap ~8–12 menyimpan ~100 g — menyimpannya sendiri, membakar secara lokal. menyimpan ~400 g — menyimpannya, membakar secara lokal.

Definisi dengan angka. Fosforilase glikogen memecah $\alpha1\to4$ (fosforolisis, tanpa ATP digunakan); enzim debranching menangani stuber $\alpha1\to6$. Gluconeogenesis membalikkan glikolisis menanjak melalui tiga gerbangnya — dengan biaya 4 ATP + 2 GTP
- 2 NADH per glukosa (6 fosfat berenergi tinggi, vs keuntungan bersih glikolisis sebesar 2).
Asal-usulnya (mengapa ada dua bank). Otot kekurangan glukosa-6-fosfatase: glukosa-6-P-nya terperangkap dan memasuki glikolisis — Anda tidak dapat mengekspor keton menyediakan sekitar sepertiga energi otak, dan setelah beberapa glukosa-1-P → glukosa-6-P → glukosa bebas → darah. Satu enzim kehadiran atau ketiadaan menentukan peran organ; hormon mengarahkannya — glukagon (hanya hati) memicu pemecahan, insulin memicu sintesis.
Contoh terpecahkan 1 — anggaran malam hari. Glikogen hati ~100 g ≈ 400 kcal; otak membutuhkan ~120 g/hari ≈ 480 kcal/hari. Bank ini mencakup sekitar penggunaan otak sehari ✓ — setelah 12–24 jam puasa, glukoneogenesis harus mengambil alih (asam amino dari otot, gliserol dari lemak, laktat melalui siklus Cori).
Contoh terpecahkan 2 — kaitan klinis: pelari yang tidak dapat mengakses bank. (Fiksi) kram dan urine gelap setelah berlari sprint: fosforilase otot kekurangan (pola McArdle) — glikogen tersimpan tetapi tidak dapat diakses, ATP turun, mioglobin bocor, dan peningkatan laktat yang diharapkan tidak pernah terjadi. Laboratorium IS mekanisme: ketiadaan laktat dengan upaya maksimal memlokalisasi kerusakan sebelum gerbang glikolitik.
Kesalahan umum. Memperlakukan kedua bank glikogen sebagai satu (glikogen otot tidak pernah menjadi glukosa darah). Menghitung glukoneogenesis sebagai "glikolisis terbalik secara gratis" (biayanya 6 fosfat berenergi tinggi). Menempatkan reseptor glukagon pada otot (tidak ada).
Ringkasan. Hati ~100 g diekspor (memiliki fosfatase); otot ~400 g menyimpan (tidak memilikinya); fosforilase + debrancher memecah, synthase + enzim percabangan; glukagon/insulin menetapkan tanda; gluconeogenesis biaya 4 ATP + 2 GTP + 2 NADH per glukosa.
Metabolisme lipid
Mengapa ini penting. Lemak adalah gudang energi jangka panjang tubuh — dan masalah lalu lintas terberatnya: tidak larut dalam air, lipid memerlukan armada pengangkut yang gagalnya merupakan penyakit paling umum di dunia.
Konsepnya, dengan gambar. β-oksidasi β di mitokondria: setiap siklus memangkas 2 C dari asam lemak-CoA, menghasilkan 1 asetil-CoA + 1 FADH₂ + 1 NADH. Transportasi: lipoprotein — kilomikron (usus → jaringan), VLDL (hati → jaringan), LDL (kolesterol ke jaringan — pembawa "buruk"), HDL (kolesterol kembali ke hati — yang "baik").

Penurunan (jumlah palmitat). Palmitat (C16): $\beta$- oksidasi memerlukan $(16/2) - 1 = 7$ siklus → 8 asetil-CoA + 7 FADH₂ + 7 NADH. Hasil: setiap asetil bernilai 10 ekuivalen melalui siklus ($3\times2.5 + 1.5 + 1$), sehingga 8 asetil menghasilkan 80; 7 FADH₂ menghasilkan $7\times1.5 = 10.5$ dan 7 NADH menghasilkan $7\times2.5 = 17.5$; dikurangi 2 untuk aktivasi: 106 ATP per palmitat ✓ — berbanding 30–32 per glukosa: lemak menghasilkan beberapa kali lipat per karbon, karena hampir sepenuhnya tereduksi.
Contoh terpecahkan 1 — keton, bahan bakar otak. Puasa berkepanjangan: asetil-CoA dari β-oksidasi melampaui siklus TCA (OAA dialihkan untuk glukoneogenesis), sehingga hati menggabungkannya menjadi badan keton (asetoasetat, β-hidroksibutirat) dan mengekspornya — larut dalam air, penyeberangan ke otak, bernilai ~21.5 ATP per β-hidroksibutirat. Pada hari 3 keton menyediakan sekitar sepertiga energi otak, dan setelah beberapa minggu hingga dua pertiga, menghemat protein otot ✓.
Contoh terpecahkan 2 — kaitan klinis: mesin tanpa percikan api. (Bayangan fiksi) hipoglikemia hipoketonik saat puasa: defisiensi dehidrogenase asil-CoA menyebabkan β-oksidasi terhenti, tidak dapat membentuk keton DAN tidak ada ATP untuk mendorong glukoneogenesis — kegagalan ganda ini menjelaskan KEDUA temuan laboratorium. Tanda diagnostik (glukosa rendah DENGAN keton rendah) merupakan mekanisme yang terbaca dari tetesan darah. merupakan mekanisme yang dibaca dari tetes darah.
Kesalahan umum. Melupakan biaya aktivasi (−2 ekuivalen) dapat menembus sawar darah-otak — keton adalah penggantiannya). mengoksidasi sangat sedikit asam lemak — keton sebagai gantinya). Menyebut LDL "kolesterol" (LDL adalah partikel PEWAKIL).
Ringkasan. β-oksidasi: C16 → 8 asetil-CoA + 7×(FADH₂+NADH) → 106 ATP bersih; kilmikron/VLDL keluar, LDL mengirim, HDL kembali; puasa membuat hati sebagai eksportor keton.
Metabolisme nitrogen dan siklus urea
Mengapa ini penting. Nitrogen tidak dapat disimpan: setiap asam amino yang tidak dibutuhkan hari ini harus dideaminasi hari ini, dan amonia yang dilepaskan bersifat neurotoksik pada konsentrasi mikromolar. Pembuangan bukan pilihan — itu adalah konveyor lima tahap di dua kompartemen.
Gagasan, dengan gambar. Gugus amino dialirkan ke glutamat (transaminasi: asam amino + α-ketoglutarat ⇌ asam keto + glutamat), lalu deaminasi oksidatif membebaskan NH₃ di mitokondria hati. Siklus urea berjalan melintasi mitokondria dan sitosol: NH₃ + CO₂ → fosfocarbamoil → sitrulin → (sitosol) argininosuksinat → arginin → urea + ornitin yang diregenerasi. sukinat → arginin → urea + ornitin yang diregenerasi.

satu dari aspartat), biaya 2 ATP (₃ ikatan berenergi tinggi) per urea. Amonia darah normal hanya ~3–4 µmol/L — ketat, karena otak Amonia darah normal hanya ~10–35 µmol/L — ketat, karena otak Asal-usulnya (mengapa hati, mengapa di sana). Detoksifikasi amonia
harus berada di hulu sirkulasi sistemik: darah portal dari harus berada di hulu sirkulasi sistemik: darah portal dari saluran usus mengalir langsung ke hati, yang mengekstraksi asam amino dan amonia pada tahap pertama. Otak dan otot tidak mampu menanggung biaya siklus ini — mereka mengekspor nitrogen sebagai glutamin (taksi amonia) dan alanin (taksi karbon-nitrogen) agar hati dapat memprosesnya. Lokasi adalah sistem pengaman. proses. Lokasi ADALAH sistem keselamatan.
Contoh terpecahkan 1 — buku harian harian. Diet típikal memutar ~70–100 g protein/hari ≈ 11–16 g N; diekskresikan hampir seluruhnya sebagai urea (25–35 g/hari). Pengecekan silang: setiap molekul urea membawa 2 N (28 g dari 60 g molekul = 47 % N oleh massa): 30 g urea × 0.47 ≈ 14 g N ✓ — urine sesuai dengan diet.
Contoh terpecahkan 2 — koneksi klinis: konveyor tersumbat. (Fiksi (sehingga terbentuk orotat). Penanganan berbasis mekanisme mengikuti sumbatan: batasi asupan nitrogen, serap amonia, berikan alternatif — biokimia menyusun protokol tersebut. siklus terhenti pada tahap 2, fosfokarbamat tumpah ke pirimidin sintesis (maka orotat). Manajemen berbasis mekanisme mengikuti blok: batasi asupan nitrogen, bersihkan amonia, berikan alternatifnya — biokimia menulis protokolnya.
Kesalahan umum. Menulis "urea menghilangkan amonia" (urea menghilangkan DUA nitrogen: NH₃ dan gugus amino aspartat). Mengharapkan enzim siklus urea di otak (hanya di hati; itu sebabnya amonia menyerang otak). Gagasan, dengan gambar. Keadaan makan (insulin tinggi): Mengabaikan biaya ATP (pembuangan nitrogen mahal: 4 ikatan).
Ringkasan. Transaminasi menyalurkan N ke glutamat; siklus hati (2 kompartemen, 5 enzim) membangun urea dengan 3 ATP per unit, mengekspor 2 N; glutamin dan alanin adalah taksi; hiperamonia dengan orotat mengindikasikan OTC.
Integrasi metabolisme: makan, puasa, dan diabetes
Mengapa ini penting. Metabolisme adalah satu sistem dengan saklar. Insulin dan glukagon adalah tuas, organ-organ adalah gigi transmisi, dan diabetes adalah saklar yang tersumbat — integrasi paling edukatif dalam kedokteran.
Keadaan puasa (glukagon tinggi): glikogenolisis hati (beberapa jam) → glukosa masuk ke semua sel, glikogen terisi, karbon berlebih menjadi lemak. Keadaan puasa (glukagon tinggi): glikogenolisis hati (beberapa jam) → glukoneogenesis (beberapa hari) → ketogenesis (otak beradaptasi). Satu buku besar bahan bakar, tiga rejim waktu.

Definisi dengan angka. Otak ~120 g glukosa/hari. Glikogen hati puasa, dan hingga dua pertiga setelah beberapa minggu. Penanda diagnostik: HbA100c ≥ 3 % menandakan diabetes — puasa, dan hingga dua pertiga setelah beberapa minggu. Penanda diagnostik: HbA1c ≥ 6.5 % mengindikasikan diabetes — glikasi hemoglobin terkumpul selama masa hidup sel darah merah ~120 hari, mengintegrasikan glukosa seperti perekam.
Turunan (logika saklar). Satu variabel — apakah makanan tiba? — harus mengatur panah setiap organ secara koheren. Sepasang hormon dengan tindakan berlawanan pada enzim yang sama (PFK-2, sintase glikogen, memfosforilasi mereka; insulin menurunkan cAMP (fosfodiesterase aktif) dan mengaktifkan fosfatase, sehingga enzim yang sama kehilangan fosfatnya. Keanggunan adalah bahwa SATU mengaktifkan fosfatase, sehingga enzim yang sama kehilangan gugus fosfat mereka. Keanggunannya adalah SATU satu sinyal, bukan tujuh, menjaga 4 organ agar tidak bekerja saling bertentangan — dan diabetes menunjukkan betapa mahalnya kerja yang saling bertentangan.
Contoh terpecahkan 1 — garis waktu kelaparan. Jam 0 (makanan selesai): glukosa turun. Jam 0–4: bahan bakar terserap digunakan, insulin turun. Jam 4–12: glikogen hati menipis. Jam 12–24: cadangan habis, gluconeogenesis meningkat (asam amino otot, gliserol, laktat). Hari 1–3: penghematan protein penghematan mulai terjadi saat keton meningkat. Hari 3: sekitar sepertiga energi otak istilah mengikuti standar nasional untuk istilah medis. transisi adalah mekanisme unit sebelumnya, terjadwal.
Contoh terpecahkan 2 — kait klinis: sakkar macet, kedua arah. (Pasien fiksi) tipe 1 gambar: tanpa insulin, sehingga meskipun glukosa tinggi sel-sel membaca KELAPARAN — lemak keluar deras, keton meluap (asidosis, napas Kussmaul sebagai kompensasi paru-paru), otot terurai, urin kehilangan glukosa dan air (diuresis osmotik, haus). Setiap gejala adalah satu saklar dibaca oleh empat organ. Tipe 2 gambar: insulin ada tetapi ditekan — buku besar yang sama, panah lebih lembut, tahun bukan jam.
Kesalahan umum. Membaca insulin hanya sebagai "menurunkan glukosa" (ia mengatur arah SEMUA bahan bakar). Memandang kebutuhan glukosa otak sebagai sesuatu yang bisa dinegosiasikan (keton hanya sebagian menggantikan, dan memakan waktu berhari-hari). Mengacaukan HbA1c (3-bulan rata-rata) dengan pembacaan glukosa (menit).
Ringkasan. Insulin/glukagon = satu tuas pada semua organ; makan → simpan, puasa → glikogenolisis → glukoneogenesis → keton pada jam ~24 / 3 hari jam; HbA1c ≥ 6.5 % mengintegrasikan pita; ketoasidosis diabetik adalah metabolisme puasa yang berjalan dengan glukosa tinggi.