O que este curso é e como usá-lo
Este é o segundo curso de Medicina Universitária: médico bioquímica. MED01 construiu a célula; este curso a preenche — as moléculas, as enzimas e os fluxos de combustível que mantêm um humano em funcionamento, e a química que a medicina clínica lê todos os dias.
Limite de escopo, declarado uma vez: curso de estudo, não diploma médico; cada caso abaixo é fictício e nada aqui licencia ou orienta tratamento.
- Unidades 2.1–2.2 são a maquinaria: proteínas e cinética enzimática.
- Unidades 2.3–2.4 são energia: glicólise e motor oxidativo.
- Unidades 2.5–2.7 são armazenamento e tráfego: glicogênio, lipídios, nitrogênio.
- Unidade 2.8 integra: estado alimentado, jejum e diabetes como um único registro.
Hábito médico: mecanismo antes do fato — cada constante enzimática, contagem de ATP e fluxo de combustível abaixo são algo que você recalcula, e toda ligação clínica nomeia o passo quebrado.
Proteínas e estrutura proteica
Por que importa. Enzimas, transportadores, anticorpos, receptores — quase tudo o que uma célula faz, uma proteína faz. A estrutura não é enfeite: um nível se constrói sobre o anterior, e cada nível é um lugar onde uma mutação pode causar falha.
A ideia, com uma imagem. Quatro níveis: primário (o sequência de aminoácidos, lida N→C), secundária (hélice $\alpha$, folha $\beta$, mantida por ligações H da cadeia principal), terciária (dobramento completo 3D, núcleo hidrofóbico), quaternária (montagem de subunidades).

Definições com números. 20 aminoácidos; ligação peptídica ~1.33 Å. O proteína de referência é a hemoglobina (Hb): 4 subunidades ($\alpha_{2}\beta_{2}$), 4 grupos hem, 64.5 kDa, cada um O₂ — até 4 O₂ por molécula.
A derivação (cooperatividade). Mioglobina liga O₂ com uma hipérbole simples; hemoglobina liga com curva sigmoidal S porque cada hiperbola; hemoglobina liga com forma sigmoidal S porque cada O₂ ligado desloca as subunidades do estado de baixa afinidade T para o estado de alta afinidade R — ligação auxilia a ligação: cooperatividade. O coeficiente de Hill $n_H \approx 2.8$ (máximo 4) diz "quase totalmente cooperativo". Fisiológico carga: carregamento completo nos pulmões ($pO_{2} \approx 100$ mmHg), cerca de 25 % descarga em tecidos em repouso ($pO_{2} \approx 40$ mmHg) e acima de 60 % em músculo ativo ($\approx 20$ mmHg), pois a parte íngreme do meio da curva sigmoide está exatamente nesse intervalo.
Exemplo resolvido 1 — a aritmética do carregamento. O sangue carrega ~15 g Hb/dL; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL × 4 sítios = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL per mmol) — the theoretical 1.39 mL O₂ per g Hb. The measured figure is 1.34 mL/g, 20.1 mL O₂/dL ✓, a little lower because alguma hemoglobina está em formas que não podem transportar O₂.
Exemplo resolvido 2 — vínculo clínico: uma microbeada carregada. (Fictício paciente) HbS: uma Glu→Val na posição 6 da cadeia β torna um fragmento de superfície carregado hidrofóbico; no estado T desoxi, ela se encaixa em uma cavidade numa vizinha, polimerizando a Hb e falcificando a célula. Estrutura primária, uma perla alterada muda o comportamento quaternário — e vaso-oclusão se segue. A doença falciforme é uma doença de estrutura primária com consequências quaternárias. superfície carregado hidrofóbico; no estado T desoxi, ela se encaixa em uma cavidade numa vizinha, polimerizando a Hb e falcificando a célula. Estrutura primária, uma perla alterada muda o comportamento quaternário — e vaso-oclusão se segue. A doença falciforme é uma doença de estrutura primária com consequências quaternárias. na vizinha, polimerizando a Hb e falcificando a célula. Estrutura primária, uma perla alterada muda o comportamento quaternário — e vaso-oclusão se segue. A doença falciforme é uma doença de estrutura primária com consequências quaternárias. Estrutura primária, uma perla alterada muda o comportamento quaternário — e vaso-oclusão se segue. A doença falciforme é uma doença de estrutura primária com consequências quaternárias. Estrutura primária, uma perla alterada muda o comportamento quaternário — e vaso-oclusão se segue. A doença falciforme é uma doença de estrutura primária com consequências quaternárias. Estrutura primária, uma perla alterada muda o comportamento quaternário — e vaso-oclusão se segue. A doença falciforme é uma doença de estrutura primária com consequências quaternárias.
Erros comuns. Interpretar "desnaturalização" como ruptura de ligações peptídicas (ela desdobra a estrutura; a sequência sobrevive). Tratar todas as mutações como igualmente graves (alterações conservadoras na superfície podem ser silenciosas; núcleo ou sítio ativo não são). Esquecer os ligantes da Hb (H⁺, CO₂, 2,3-BPG deslocam a curva — a fisiologia depende desses deslocamentos). deslocar a curva — a fisiologia depende desses deslocamentos).
Resumo. Sequência → dobra → 3D → montagem; Hb é o tetrámero de referência com curva sigmoide, ligação cooperativa ($n_H \approx 2.8$); uma microbeada (Glu6Val) pode reconfigurar o comportamento quaternário.
Enzimas e cinética enzimática
Por que importa. Quase todo diagnóstico em painel sanguíneo é atividade enzimática; quase todo fármaco é inibidor enzimático. Cinética é como a bioquímica se torna mensurável — e como você lerá o laboratório. Quase todo diagnóstico em painel sanguíneo é atividade enzimática; quase todo fármaco é inibidor enzimático. Cinética é como a bioquímica se torna mensurável — e como você lerá o laboratório. Quase todo diagnóstico em painel sanguíneo é atividade enzimática; quase todo fármaco é inibidor enzimático. Cinética é como a bioquímica se torna mensurável — e como você lerá o laboratório.
A ideia, com uma imagem. Uma enzima reduz a barreira de ativação e permanece inalterada após o uso. A curva de velocidade é Michaelis–Menten: $v = \frac{V_{max}[S]}{K_m + [S]}$, onde $K_m$ é a concentração de substrato na VELOCIDADE SEMI-MÁXIMA.

A dedução (por que ocorre a saturação). E + S ⇌ ES → E + P: em baixas $[S]$, quase toda E está livre, logo $v \approx (V_{max}/K_m)\cdot[S]$ — first order in S. At high $[S]$, every E is in ES: $v$ approaches $V_{max}$ — ordem zero. A reta do duplo recíproco (Lineweaver–Burk) $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ transforma a hipérbole em uma linha reta: ordenada no eixo y $1/V_{max}$, ordenada no eixo x $-1/K_m$.
Exemplo resolvido 1 — leitura de dados. Uma enzima fornece $v = 33$ µmol/min em $[S] = 1$ mM e $v = 60$ em $[S] = 4$ mM. Escreva $v = V[S]/(K+[S])$ duas vezes e divida: $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓. Verifique o ponto médio: em $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
Exemplo resolvido 2 — vínculo clínico: o bloqueador competitivo. (Paciente fictício sob um inibidor tipo estatina) um fármaco imita o do substrato e ocupa o sítio ativo (inibição competitiva) ): apparent $K_m$ rises, $V_{max}$ unchanged — overcome by more substrate, and the L-B lines intersecção NO eixo y. Ligação não competitiva em outro local reduz $V_{max}$ e deixa $K_m$ inalterado (linhas se encontram NO eixo x). Leitura qual linha se move É o mecanismo.
Erros comuns. Chamar $K_m$ de afinidade (é uma concentração; baixo $K_m$ significa alta afinidade aparente). Ajustar dois pontos na cabeça sem verificar um terceiro. Esperar que inibidores alterem QUANTIDADE de enzima (indução faz isso; inibidores alteram a atividade).
Resumo. $v = V_{max}[S]/(K_m+[S])$; $K_m$ = $[S]$ na metade-$V_{max}$; competitivo: $K_m$↑ $V_{max}$ mesmo; não competitivo: $V_{max}$↓ $K_m$ mesmo; interceptos L-B identificam qual.
Bioenergética e glicólise
Por que importa. As células pagam tudo com ATP, e a moeda de troca é exata: reações acopladas ocorrem apenas descendentes em energia livre. Glicólise é o modo mais antigo e conservado de produzir ATP — e o âncora metabólica de toda unidade posterior.
A ideia, com uma imagem. Acoplamento: uma reação desfavorável ocorre apenas quando acoplada a uma favorável ($\Delta G$ adiciona). Glicólise divide uma glicose (6 C) em duas piruvato (3 C): fase de investimento (2 ATP gastos), fase de retorno (4 ATP + 2 NADH produzidos), líquido 2 ATP + 2 NADH ✓ — independente de oxigênio.

Definições com números. As três etapas essencialmente irreversíveis ($\Delta G^{\circ\prime}$ fortemente negativo): hexocinase (−16.7 kJ/mol), PFK-1 (−14.2, a etapa COMPROMETIDA e principal control), pyruvate kinase (−31.4). Without O₂, NAD⁺ is regenerated by lactato desidrogenase: piruvato + NADH → lactato (fermentação).
A derivação (por que PFK-1 é o portão). A teoria de controle diz: regule a primeira etapa comprometida e irreversível. A hexocinase é pré-comprometida (outros açúcares a utilizam); a piruvato quinase está tarde demais (o investimento já foi feito). A PFK-1 é a primeira etapa exclusiva da glicólise — assim, AMP and ADP activate it; ATP and citrate inhibit it; fructose-2,6- bisfosfato (sinal de insulina) a ativa poderosamente. Uma enzima monitora todo o estado energético celular.
Exemplo resolvido 1 — o balanço do ATP. Por glicose: −2 (investimento) +4 (recuperação) = líquido 2 ATP; mais 2 NADH (citósico — vale 5 ATP via transportador de malato ou 3 via fosfato de glicerol, unidade 2.4). Anaerobiamente os 2 NADH são consumidos reduzindo novamente o piruvato em lactato: o rendimento anaeróbico é exatamente 2 ATP ✓.
Exemplo resolvido 2 — vínculo clínico: a porta que não abre. (Paciente fictício) cãibras musculares em segundos de sprint, sem aumento de lactato sanguíneo: a fosforilase muscular atua (glicogênio se decompõe), mas PFK-1 is deficient — sugar phosphates pile up before the gate, the payoff nunca ocorre, ATP cai e mioglobina vaza. Um portão, uma síndrome de esforço: a etapa regulada regulado é o locus da doença.
Erros comuns. Contar ATP bruto quando se pede líquido. Posicionar a regulação em etapas reversíveis (a regulação reside em portões irreversíveis). Esquecer que a regeneração anaeróbica do NAD⁺ é por que o lactato se forma (não um subproduto — uma necessidade redox).
Resumo. Glicose → 2 piruvato, saldo líquido 2 ATP + 2 NADH, três portões irreversíveis com PFK-1 comprometida; AMP/ADP liga, ATP/citrato desliga; lactato compra NAD⁺ quando O₂ está ausente.
Ciclo do TCA e fosforilação oxidativa
Por que importa. O oxigênio existe para uma única função no corpo: aceitar elétrons ao final da cadeia de transporte. O ciclo do TCA converte unidades acetílicas nesses elétrons, e a ATP sintase converte sua queda em ~90 % do ATP corporal. Esta unidade torna o metabolismo energético quantitativo.
A ideia, com uma imagem. O ciclo do TCA (Krebs): acetyl-CoA (2 C) + oxaloacetate (4 C) → citrate (6 C) → two decarbox- ylations return to oxaloacetate, yielding per acetyl: 3 NADH, 1 FADH₂, 1 GTP. The electron transport chain (inner mitochondrial membrane): complexes I, III, IV pump H⁺ out; the return Elétrons caem até o oxigênio; o gradiente que formam é a represa; a ATP sintase é a turbina
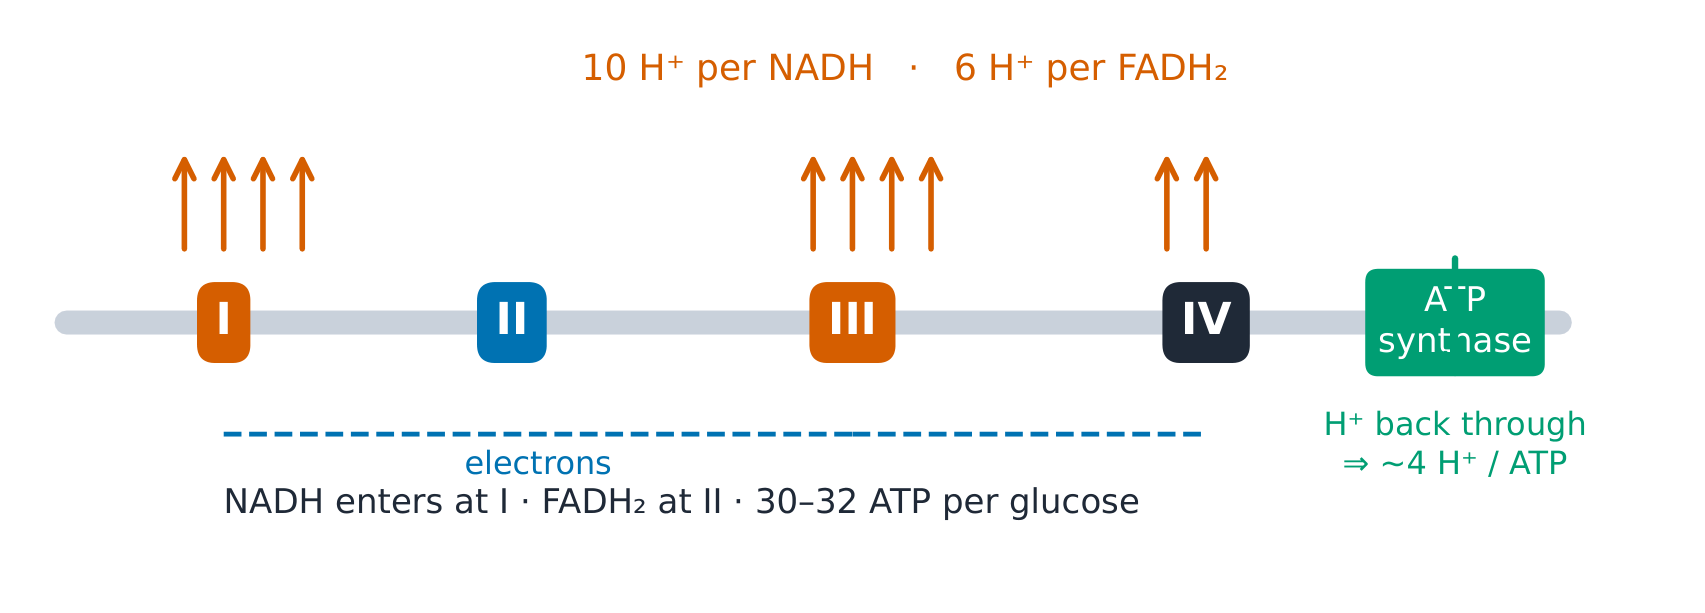
O cálculo moderno da produção de ATP. Por NADH: complexos I+III+IV pump 4+4+2 = 10 H⁺; per FADH₂ (entry at II): III+IV = 6 H⁺. ATP synthase needs ~3 H⁺/ATP plus 1 H⁺ to import Pi: 4 H⁺/ATP. So NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — and per glucose, counting every carrier: 2 (glycolysis ATP) + 2×2.5 (its com glicerol fosfato (o antigo "2–2.5" usava P/O arredondado de 2 6×2.5 (TCA NADH) + 2×1.5 = 32 ATP with the malate shuttle, 30 Exemplo resolvido 36 — aritmética da acetil. Uma glicose → 38 piruvato → 3 and 2).
Worked example 1 — acetyl arithmetic. One glucose → 2 pyruvate → 2 do orçamento aeróbico total (2 de 2), tudo oriundo dos pares de elétrons 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 equivalentes de ATP — três quartos do orçamento aeróbico total (25 de 32), todos dos pares de elétrons destinado a O₂.
Exemplo resolvido 2 — vínculo clínico: turbina bloqueada. (Ficcional vignete de superdose) colapso com sangue venoso vermelho vivo: cianeto liga-se complexo IV, elétrons não alcançam O₂, a bomba para, o gradiente colapsa e a ATP sintase para (pode até funcionar ao contrário, gastando ATP). A química explica o sinais: tecidos não conseguem extrair O₂ (sangue venoso permanece vermelho), lactato dispara (a glicólise isolada persiste). Tratamentos existem para contornar ou superar o bloqueio — mecanismo primeiro, antídoto depois.
Erros comuns. Dizer que o ciclo "produz ATP" diretamente (ele produz GTP + portadores reduzidos; a cadeia gera o gradiente). Contar CO₂ como proveniente dos "carbonos acetila desta volta" (eles saem em voltas posteriores — o ciclo mistura seus carbonos). Usar P/O 3 e 2 sem especificar qual convenção.
Resumo. Acetil → 3 NADH + 1 FADH₂ + 1 GTP por volta; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5; 30–32 ATP por glicose (contagem moderna, dependente do shuttle); complexo IV é onde o oxigênio rende seu valor.
Glicogênio e gluconeogênese
Por que importa. O cérebro consome ~120 g de glicose por dia e não armazena nenhuma. Entre as refeições, o corpo vive com dois depósitos de glicose com diferentes proprietários — e no jejum deve sintetizar glicose do zero.
A ideia, com uma imagem. Glicogênio: glicose ramificada polímero ($\alpha 1\to4$ cadeias, $\alpha 1\to6$ ramificações a cada ~8–12 resíduos). O fígado armazena ~100 g — EXPORTA glicose ao sangue; o músculo armazena ~400 g — retém e queima localmente.

Definições com números. A glicogenofosforilase cliva $\alpha1\to4$ (fosforólise, sem gasto de ATP); a enzima desramificadora gerencia os cotos $\alpha1\to6$. Gluconeogênese inverte a glicólise sobe por três portões — custando 4 ATP + 2 GTP
- 2 NADH por glicose (6 fosfatos de alta energia, vs o saldo líquido da glicólise A derivação (por que dois depósitos). O músculo carece de glicose-2-fosfatase:
sua glicose-6-P fica aprisionada e alimenta a glicólise — não é possível exportar sua glicose-6-P fica aprisionada e alimenta a glicólise — você não pode exportar o que não pode desfosforilar. O fígado TEM a fosfatase: glicogênio → glicose-1-P → glicose-6-P → glicose livre → sangue. Uma enzima glucagon (apenas no fígado) desencadeia a degradação, insulina desencadeia a síntese. insulina desencadeia a síntese.
Exemplo resolvido 1 — o orçamento noturno. Glicogênio hepático ~100 g ≈ 400 kcal; o cérebro precisa de ~120 g/dia ≈ 480 kcal/dia. O banco cobre aproximadamente um dia de uso cerebral ✓ — após 12–24 h em jejum, a gluconeogênese deve assumir (aminoácidos do músculo, glicerol da gordura, lactato pelo ciclo de Cori).
Exemplo resolvido 2 — vínculo clínico: o corredor que não pode acessar o estoque.** (Fictício) cãibras e urina escura após corrida rápida: fosforilase muscular está deficiente (padrão McArdle) — o glicogênio está armazenado mas inacessível, o ATP cai, a mioglobina é liberada e o aumento esperado de lactato nunca ocorre. O laboratório é o mecanismo: lactato ausente com esforço máximo localiza a falha antes da porta gicolítica.
Erros comuns. Tratar os dois estoques de glicogênio como um só (glicogênio muscular nunca se torna glicose sanguínea). Contar a gluconeogênese como "glicólise reversa grátis" (custa 6 fosfatos de alta energia). Colocar receptores de glucagon no músculo (não existem).
Resumo. Fígado ~100 g exporta (tem a fosfatase); músculo ~400 g retém (não a possui); fosforilase + desramificadora quebram, sintetase + enzima ramificadora constroem; glucagon/insulina definem o sinal; gluconeogênese custa 4 ATP + 2 GTP + 2 NADH por glicose.
Metabolismo lipídico
Por que importa. A gordura é o armazém de energia de longo prazo do corpo — e seu maior problema de tráfego: insolúvel em água, lipídios precisam de frota de transporte cujas falhas são a doença mais comum do mundo.
A ideia, com uma imagem. β-oxidação β nas mitocôndrias: cada ciclo remove 2 C de uma acil-CoA, produzindo 1 acetil-CoA + 1 FADH₂ + 1 NADH. Transporte: lipoproteínas — quilomícrons (intestino → tecidos), VLDL (fígado → tecidos), LDL (colesterol para tecidos — o transportador "ruim"), HDL (colesterol de volta ao fígado — o "bom").

A derivação (a contagem de palmitato). Palmitato (C16): $\beta$- oxidação precisa de $(16/2) - 1 = 7$ ciclos → 8 acetil-CoA + 7 FADH₂ + 7 NADH. Rendimento: cada acetil vale 10 equivalentes pelo ciclo ($3\times2.5 + 1.5 + 1$), então 8 acetil dá 80; os 7 FADH₂ dão $7\times1.5 = 10.5$ e os 7 NADH dão $7\times2.5 = 17.5$; menos 2 por ativação: 106 ATP por palmitato ✓ — contra 30–32 por glicose: a gordura paga várias vezes mais por carbono, pois está quase totalmente reduzida.
Exemplo resolvido 1 — cetonas, o combustível do cérebro. Jejum prolongado: acetil-CoA da β-oxidação supera o ciclo de TCA (OAA desviado para gluconeogênese), então o fígado condensa-o em corpos cetônicos (acetoacetato, β-hidroxibutirato) e os exporta — hidrossolúveis, cruzando para o cérebro, vale ~21.5 ATP por β-hidroxibutirato. No dia 3 cetonas fornecem cerca de um terço da energia cerebral, e após várias semanas até dois terços, poupando proteína muscular ✓.
Exemplo resolvido 2 — vínculo clínico: o motor sem faísca. (Criança fictícia) hipocetose hipoglicêmica por jejum: uma acil-CoA desidrogenase está deficiente, a β-oxidação estagna, não há produção de cetonas NEM ATP para impulsionar a gluconeogênese — o duplo fracasso explica AMBAS as achados laboratoriais. A assinatura diagnóstica (glicose baixa COM cetonas baixas) é o mecanismo lido em um ponto de sangue.
Erros comuns. Esquecer o custo de ativação (−2 equivalentes) na contagem de ATP. Esperar que o cérebro consuma ácidos graxos de cadeia longa (ele oxida muito pouca gordura — cetonas são seu substituto). Chamar LDL de "colesterol" (é a partícula CARREGADORA).
Resumo. β-oxidação: C16 → 8 acetil-CoA + 7×(FADH₂+NADH) → 106 ATP líquido; quilomícrons/VLDL saem, LDL entregam, HDL retornam; o jejum transforma o fígado em exportador de cetonas.
Metabolismo do nitrogênio e ciclo da ureia
Por que importa. O nitrogênio não pode ser armazenado: toda aminoácido que não for necessário hoje deve ser desaminado hoje, e a amônia liberada é neurotóxico em concentrações micromolares. A disposição não é opcional — ela é uma esteira de cinco etapas através de dois compartimentos.
A ideia, com uma imagem. Os grupos amino convergem para glutamato (transaminação: aminoácido + α-cetoglutarato ⇌ ácido cetona + glutamato), em seguida a desaminação oxidativa libera NH₃ na mitocôndria hepática. O ciclo da ureia ocorre entre a mitocôndria e o citosol: NH₃ + CO₂ → fosfocarbamoil → citrulina → (citosol) arginino- succinato → arginina → ureia + ornitina regenerada.

Definições com números. Ureia: 2 N por molécula (um de NH₃, outro do aspartato), custo 3 ATP (4 ligações de alta energia) por ureia. A amônia sanguínea normal é apenas ~10–35 µmol/L — estreita, porque o cérebro não possui ciclo da ureia.
A derivação (por que o fígado, por que ali). A detoxificação da amônia deve ocorrer antes da circulação sistêmica: o sangue portal do intestino drena diretamente no fígado, que extrai aminoácidos e amônia na primeira passagem. O cérebro e o músculo não podem arcar com o custo do ciclo — eles exportam nitrogênio como glutamina (o táxi da amônia) e alanina (o táxi de carbono e nitrogênio) para o fígado e alanina (o táxi de carbono e nitrogênio) para o fígado realizar processo. A localização é o sistema de segurança.
Exemplo resolvido 1 — o diário diário. Uma dieta típica gira ~70–100 g proteína/dia ≈ 11–16 g N; excretados quase inteiramente como ureia (25–35 g/dia). Verificação cruzada: cada molécula de ureia carrega 2 N (28 g de 60 g molécula = 47 % N em massa): 30 g de ureia × 0.47 ≈ 14 g N ✓ — a urina corresponde à dieta.
Exemplo resolvido 2 — vínculo clínico: a correira bloqueada. (Recém-nascido fictício) letargia seguida de coma após as primeiras refeições, amônia elevada, ácido orótico na urina: deficiência de ornitina transcarbamilase — o ciclo travado no passo 2, carbamoil fosfato escoa para a síntese de pirimidinas (daí o orotato). O manejo baseado em mecanismo segue o bloqueio: limitar a ingestão de nitrogênio, capturar a amônia, fornecer alternativas — a bioquímica redige o protocolo.
Erros comuns. Escrever "ureia remove amônia" (ela remove DOIS nitrogênios: NH₃ e o grupo amino do aspartato). Esperar enzimas do ciclo da ureia no cérebro (apenas no fígado; é por isso que a amônia atinge o cérebro). Esquecer o custo em ATP (a eliminação de nitrogênio é custosa: 4 ligações).
Resumo. Transaminação direciona N para o glutamato; o ciclo hepático (2 compartimentos, 5 enzimas) constrói ureia a 3 ATP cada, exportando 2 N; glutamina e alanina são os táxis; hiperamonemia com orotato pontos para OTC.
Integração do metabolismo: estado alimentado, jejum e diabetes
Por que importa. O metabolismo é um sistema com uma chave. Insulina e glicogênio são a alavanca, os órgãos são as engrenagens, e a diabetes é a chave travada — a integração mais instrutiva da medicina.
A ideia, com uma imagem. Estado alimentado (insulina alta): glicose entra em todas as células, glicogênio se enche, carbono extra vai para gordura. Estado de jejum (glucagon alto): glicogenólise hepática (horas) → gliconeogênese (dias) → cetogênese (cérebro se adapta). Um único balanço de combustível, três regimes temporais.

Definições com números. Cérebro ~120 g de glicose/dia. Glicogênio hepático ~100 g (~por dia). Cetonas cobrem cerca de um terço da energia cerebral no dia 3 de um jejum, e até dois terços após várias semanas. Âncora diagnóstica: HbA1c ≥ 6.5 % indica diabetes — a glicosilação da hemoglobina acumula-se ao longo da vida das hemácias de ~120 dias, A derivação (a lógica da chave). Uma variável — a comida está chegando? — deve definir as setas de TODOS os órgãos coerentemente. Um par hormonal com
A derivação (a lógica de chave). Uma variável — os alimentos estão chegando? — deve definir as setas DE TODOS os órgãos de forma coerente. Um par de hormônios com ações opostas sobre as mesmas enzimas (PFK-2, glicogênio sintetase, fosforilase, lipase) alcança isso: glucagon eleva cAMP, então PKA fosforila essas enzimas; insulina reduz cAMP (fosfodiesterase ligada) e ativa fosfatases, fazendo com que as mesmas enzimas percam seus fosfatos. A elegância é que UMA única sinal, não sete, impede 4 órgãos de trabalharem em sentidos opostos — e o diabetes mostra o custo dos sentidos opostos.
Exemplo resolvido 1 — a linha do tempo de um jejum. Hora 0 (fim da refeição): a glicose cai. Horas 0–4: combustível absorvido utilizado, insulina cai. Horas 4–12: glicogênio hepático esgota-se. Horas 12–24: reserva vazia, gluconeogênese acelera (aminoácidos musculares, glicerol, lactato). Dias 1–3: economia de proteínas o poupamento começa quando as cetonas aumentam. Dia 3: cerca de um terço da energia cerebral proveniente de cetonas; semanas: até dois terços ✓ — cada transição é o mecanismo da unidade anterior, cronometrado.
Exemplo resolvido 2 — vínculo clínico: o interruptor travado, em ambos os sentidos. (Paciente fictício) tipo 1 quadro: sem insulina, então apesar da alta glicose as células leem JEJUM — gordura é liberada, cetonas inundam (acidose, respiração de Kussmaul como compensação pulmonar), músculos se degradam, urina perde glicose e água (diurese osmótica, sede). Cada sintoma é um único interruptor lido por quatro órgãos. Tipo 2 quadro: insulina presente, mas resistida — o mesmo balanço, setas mais suaves, anos em vez de horas.
Erros comuns. Interpretar a insulina apenas como "reduz glicose" (ela define a direção de TODOS os combustíveis). Tratar a necessidade cerebral de glicose como negociável (cetonas substituem parcialmente e levam dias). HbA1c confusa (3-mês média) com leitura de glicose (minutos).
Resumo. Insulina/glucagon = uma alavanca em todos os órgãos; alimentado → armazena, jejum → glicogenólise → gluconeogênese → cetona em ~24 h / 3 dia cronômetro; HbA1c ≥ 6.5 % integra a fita; acidose diabética cetótica é metabolismo em jejum funcionando com alta glicemia.