Ce que ce cours est, et comment l'utiliser
Il s'agit du second cours de Médecine Universitaire : médecine biochimie. MED01 a construit la cellule ; ce cours la remplit — les molécules, les enzymes et les flux d'énergie qui maintiennent un humain en vie, ainsi que la chimie que la médecine clinique lit chaque jour.
Limite de portée, énoncée une seule fois : un cours d'études, pas un diplôme médical ; chaque cas ci-dessous est fictif et rien ici ne license ou guide un traitement.
- Les unités 2.1–2.2 sont la machinerie : protéines et cinétique enzymatique.
- Les unités 2.3–2.4 sont l'énergie : glycolyse et moteur oxydatif.
- Les unités 2.5–2.7 sont le stockage et le transport : glycogène, lipides, azote.
- L'unité 2.8 intègre : état nourri, à jeun et diabète comme un seul registre.
L'habitude médicale : mécanisme avant fait — chaque constante enzymatique, chaque comptage ATP et chaque flux d'énergie ci-dessous sont quelque chose que vous recomputez, et chaque lien clinique nomme l'étape rompue.
Protéines et structure des protéines
Pourquoi c'est important. Enzymes, transporteurs, anticorps, récepteurs — presque tout ce qu'une cellule fait, une protéine le fait. La structure n'est pas ornement : un niveau se fonde sur le précédent, et chaque niveau est un endroit où une mutation peut tout briser.
L'idée, avec une image. Quatre niveaux : primaire (le séquence d'acides aminés, lue de N→C), secondaire (hélice $\alpha$, feuille-$\beta$, maintenu par des liaisons hydrogène du squelette), tertiaire (l'ensemble 3D, cœur hydrophobe), quaternaire (assemblage des sous-unités).

Définitions numériques. 20 acides aminés ; liaison peptidique ~1.33 Å. La protéine de référence est l'hémoglobine (Hb) : 4 sous-unités ($\alpha_{2}\beta_{2}$), 4 haem groups, 64.5 kDa, one O₂ each — up to 4 O₂ per molecule.
The derivation (cooperativity). Myoglobin binds O₂ with a simple hyperbole ; l'hémoglobine se lie avec une courbe sigmoïde S car chaque bound O₂ shifts the subunits from the low-affinity T state to the état à haute affinité R — la fixation facilite la fixation : coopérativité. Le coefficient de Hill physiologique : charge complète dans les poumons ($n_H \approx 2.8$ mmHg), ~4 % optimise la charge complète dans les poumons ($pO_{2} \approx 100$ mmHg), environ 25 % décharge dans les tissus au repos ($pO_{2} \approx 40$ mmHg) et plus de 60 % dans le muscle en activité ($\approx 20$ mmHg), car le milieu abrupt de la courbe sigmoïde coïncide exactement avec cette plage.
Exemple résolu 1 — calculs de charge. Le sang transporte ~15 g Hb/dL; 64.5 kDa ≈ 64 500 g/mol: $15/64\,500 = 2.33\times10^{-4}$ mol/dL = 233 µmol/dL ×4 sites = 930 µmol O₂/dL ≈ 20.8 mL O₂/dL (22.4 mL per mmol) — the theoretical 1.39 mL O₂ per g Hb. The measured figure is 1.34 mL/g, 20.1 mL O₂/dL ✓, a little lower because some haemoglobin is in forms that cannot carry O₂.
Worked example 2 — clinical link: one charged bead. (Fictional patient) HbS: one Glu→Val at position 6 of the β chain turns a charged surface patch hydrophobic; in the deoxy T state it docks into a pocket on a neighbour, polymerising the Hb and sickling the cell. Primary structure, one bead, changed quaternary behaviour — and vaso-occlusion suit. La maladie falciforme est une pathologie de structure primaire avec des conséquences quaternaires.
Erreurs fréquentes. Lire « dénaturation » comme la rupture des liaisons peptidiques (elle déplie le repliement ; la séquence subsiste). Traiter toutes les mutations comme égale en gravité (les changements conservateurs de surface peuvent être silencieux ; ceux du cœur ou du site actif ne le sont pas). Oublier les ligands de l’Hb (H⁺, CO₂, 2,3-BPG modifient tous la courbe — la physiologie repose sur ces déplacements).
Résumé. Séquence → repliement → 3D → assemblage ; l’Hb est le tétramère de référence avec liaison sigmoïde et coopérative ($n_H \approx 2.8$) ; un seul résidu (Glu6Val) peut réorganiser le comportement quaternaire.
Enzymes et cinétique enzymatique
Pourquoi c'est important. Presque chaque diagnostic sur un bilan sanguin correspond à une activité enzymatique ; presque tout médicament est un inhibiteur d'enzyme. La cinétique est ce qui rend la biochimie mesurable — et c'est ainsi que vous interpréterez les résultats de laboratoire. activité enzymatique ; presque tout médicament est un inhibiteur d’enzyme. La cinétique est comment la biochimie devient mesurable — et comment vous lirez les résultats de laboratoire.
L'idée, avec une image. Une enzyme abaisse la barrière d'activation et reste inchangée après utilisation. La courbe de vitesse est de Michaelis–Menten : $v = \frac{V_{max}[S]}{K_m + [S]}$, où $K_m$ correspond à la concentration en substrat à demi-vitesse maximale.

La dérivation (pourquoi la saturation). E + S ⇌ ES → E + P : à faible $[S]$, presque toute l'E est libre, donc $v \approx (V_{max}/K_m)\cdot[S]$ — ordre un par rapport à S. À forte $[S]$, chaque E est sous forme ES : $v$ tend vers $V_{max}$ — ordre zéro. La droite du double inverse (Lineweaver–Burk) $1/v = (K_m/V_{max})\cdot(1/[S]) + 1/V_{max}$ transforme l'hyperbole en une droite : ordonnée à l'origine $1/V_{max}$, abscisse à l'origine $-1/K_m$.
Exemple résolu 1 — lecture des données. Une enzyme donne $v = 33$ µmol/min à $[S] = 1$ mM et $v = 60$ à $[S] = 4$ mM. Écrire $v = V[S]/(K+[S])$ deux fois et diviser : $33(K+1) = 15(K+4)$ ⇒ $K_m = 1.5$ mM, $V_{max} = 33\times2.5 = 82.5$ µmol/min ✓. Vérifier le point à demi-saturation : à $[S] = K_m = 1.5$: $v = 82.5\times1.5/3 = 41.25 = V_{max}/2$ ✓.
Exemple résolu 2 — lien clinique : l'inhibiteur compétitif. (Patient fictif sous inhibiteur de type statine) un médicament imite le substrat et occupe le site actif (inhibition compétitive ) : la K$K_m$ apparente augmente, $V_{max}$ inchangée — contournable par plus de substrat, et les droites L-B croise l'axe des y. Une liaison non compétitive ailleurs abaisse $V_{max}$ et laisse $K_m$ inchangé (les lignes se croisent SUR l'axe des x). Lecture quelle ligne a bougé EST le mécanisme.
Erreurs courantes. Appeler $K_m$ une affinité (c'est une concentration ; une faible $K_m$ signifie en fait une haute affinité apparente). Ajuster deux points dans sa tête sans vérifier un troisième. S'attendre à ce que les inhibiteurs modifient la QUANTITÉ d'enzyme (l'induction fait cela ; les inhibiteurs changent l'activité).
Résumé. $v = V_{max}[S]/(K_m+[S])$ ; $K_m$ = $[S]$ à demi-$V_{max}$ ; compétitif : $K_m$↑ $V_{max}$ identique ; non compétitif : $V_{max}$↓ $K_m$ identique ; les intercepts L-B identifient laquelle.
Bioénergétique et glycolyse
Pourquoi c'est important. Les cellules paient tout en ATP, et la monnaie d'échange est exacte : les réactions couplées ne progressent qu'en descendant dans l'énergie libre. La glycolyse est le plus ancien et le plus conservé moyen de produire de l'ATP — et l'ancre métabolique de chaque unité ultérieure.
L'idée, avec une image. Couplage : une réaction défavorable ne fonctionne que lorsqu'elle est liée à une réaction favorable ($\Delta G$ ajouté). La glycolyse scie une molécule de glucose (6 C) en deux pyruvates (3 C) : phase d'investissement (2 ATP dépensés), phase de rendement (4 ATP + 2 NADH produits), solde net 2 ATP + 2 NADH ✓ — indépendant de l’oxygène.

Définitions numériques. Les trois étapes essentiellement irréversibles ($\Delta G^{\circ\prime}$ fortement négatif) : hexokinase (−16.7 kJ/mol), PFK-1 (−14.2, l'étape ENGAGÉE et principal contrôle), pyruvate kinase (−K31.4). Sans O₂, le NAD⁺ est régénéré par lactate déshydrogénase : pyruvate + NADH → lactate (fermentation).
La justification (pourquoi PFK-1 est la porte). La théorie du contrôle stipule : verrouiller la première étape engagée et irréversible. L'hexokinase est pré-engagée (d'autres sucres l'utilisent) ; la pyruvate kinase intervient trop tard (l'investissement est déjà réalisé). La PFK-1 est la première étape spécifique à la glycolyse — ainsi AMP et ADP l’activent ; ATP et citrate l’inhibent ; fructose-2,6- bisphosphate (signal d'insuline) l'active puissamment. Une seule enzyme surveille l'état énergétique global de la cellule.
Exemple résolu 1 — le bilan ATP. Par glucose : −2 (investissement) +4 (retour sur investissement) = bilan net 2 ATP ; plus 2 NADH (cytosolique — valant 5 ATP via le shuttle malate ou 3 via phosphate de glycérol, unité 2.4). En anaérobie les 2 NADH sont consommés pour réduire à nouveau le pyruvate en lactate : le rendement anaérobie est exactement de 2 ATP ✓.
Exemple résolu 2 — lien clinique : la porte qui ne s'ouvre pas. (Patient fictif) crampes musculaires quelques secondes après le sprint, aucune hausse de lactate sanguin : la phosphorylase musculaire fonctionne (le glycogène se dégrade), mais PFK-1 est déficiente — les phosphates sucrés s’accumulent avant la porte d’entrée, le rendement ne survient jamais, l'ATP chute et la myoglobine fuit. Une porte, un syndrome d'effort : l'étape régulée est le site de la maladie.
Erreurs courantes. Compter l'ATP brut là où l'on demande l'ATP net. Placer la régulation sur des étapes réversibles (la régulation intervient aux étapes irréversibles). Oublier que la régénération anaérobie du NAD⁺ est LA RAISON pour laquelle le lactate se forme (pas un produit de déchets — une nécessité redox).
Résumé. Glucose → 2 pyruvate, bilan net 2 ATP + 2 NADH, trois portes irréversibles avec la PFK-1 comme engagement ; AMP/ADP active, ATP/citrate inactive ; le lactate achète le NAD⁺ lorsque l'O₂ est absent.
Cycle de l'acide citrique et phosphorylation oxydative
Pourquoi c'est important. L'oxygène a une seule fonction dans l'organisme : accepter les électrons à la fin de la chaîne de transport. Le cycle de l'acide citrique convertit les unités acétyliques en ces électrons, et l'ATP synthase transforme leur chute en ~90 % de l'ATP corporel. Cette unité rend le métabolisme énergétique quantitatif.
L'idée, avec une image. Le cycle de l'acide citrique (Krebs) : acétyl-CoA (2 C) + oxaloacétate (4 C) → citrate (6 C) → deux décarboxylations FADH3, 1 GTP**. La chaîne de transport des électrons (membrane interne FADH₂, 1 GTP**. La chaîne de transport des électrons (membrane mitochondriale interne) : les complexes I, III et IV pompent H⁺ vers l'extérieur ; le retour à travers la synthase d'ATP permet à l'ATP de se former.
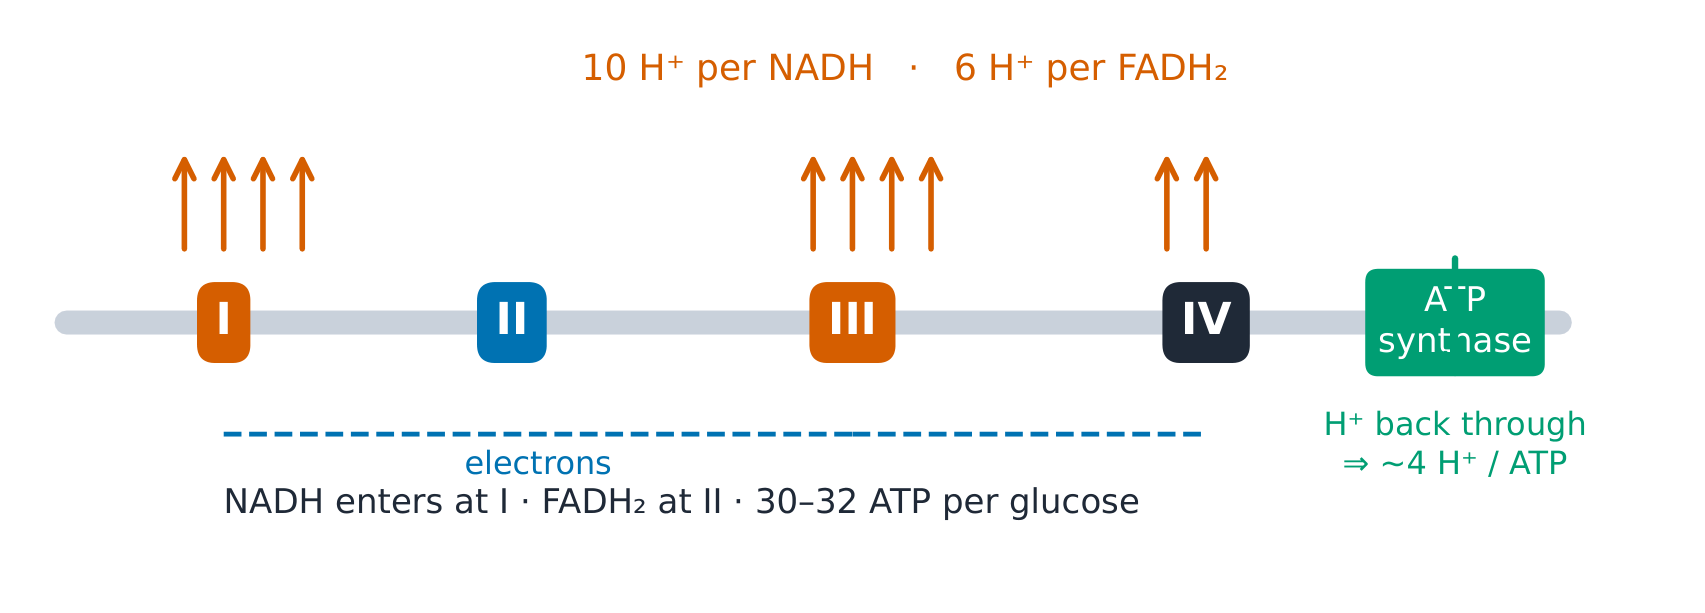 Le calcul moderne du nombre d'ATP. Par NADH : les complexes I+III+IV
Le calcul (le nombre moderne d'ATP). Par NADH : complexes I+III+IV pompent 4+4+2 = 10 H⁺ ; par FADH₂ (entrée au complexe II) : III+IV = 6 H⁺. La synthase d'ATP nécessite ~3 H⁺/ATP plus 1 H⁺ pour importer Pi : 4 H⁺/ATP. Ainsi, NADH ≈ 10/4 = 2.5 ATP, FADH₂ ≈ 6/4 = 1.5 ATP ✓ — et par NADH, navette malate-aspartate) + 2×2 (NADH déshydrogénase pyruvique) + 2.5 GTP + NADH, navette du malate) + 2×2.5 (NADH de la pyruvate déshydrogénase) + 2 GTP + 6×2.5 (NADH du cycle de l'acide tricarboxylique) + 2×1.5 = 32 ATP avec la navette du malate, 30 avec le glycérophosphate (la vieille formule "36–38" utilisait les rapports P/O arrondis de 3 et 2).
Exemple résolu 1 — calculs sur l'acétyl. Un glucose → 2 pyruvate → 2 acétyl-CoA (2 NADH provenant de la pyruvate déshydrogénase). Avec la pyruvate déshydrogénase, deux tours du cycle TCA plus l'entrée produisent 2 GTP + 8 NADH + 2 FADH₂ ✓ = 2 + 20 + 3 = 25 équivalents ATP — trois quarts du budget aérobien total (25 sur 32), tout cela provenant des paires d'électrons destiné à O₂.
Exemple résolu 2 — lien clinique : la turbine bloquée. (Fictionnel, scène de surdosage) effondrement avec du sang veineux rouge vif : le cyanure se lie au complexe IV, les électrons ne peuvent atteindre O₂, la pompe s'arrête, le gradient qui s'effondrent et la synthase d'ATP s'arrête (elle peut même fonctionner en sens inverse, consommant de l'ATP). La chimie explique le signes : les tissus ne peuvent extraire O₂ (le sang veineux reste rouge), le lactate explose (seule la glycolyse subsiste). Des traitements existent pour contourner ou surmonter ce blocage — mécanisme d'abord, antidote ensuite.
Erreurs fréquentes. Dire que le cycle « produit de l'ATP » directement (il produit GTP + porteurs réduits ; la chaîne crée le gradient). Compter CO₂ comme issu des « carbones acétyliques de ce tour » (ils partent dans DES TOURS ULTÉRIEURS — le cycle mélange ses carbones). Utiliser P/O 3 et 2 sans préciser quelle convention.
Résumé. Acétyl → 3 NADH + 1 FADH₂ + 1 GTP par tour ; 10 H⁺/NADH, 6 H⁺/FADH₂, ~4 H⁺/ATP ⇒ 2.5/1.5 ; 30–32 ATP par glucose (compte moderne, dépendant du navette) ; le complexe IV est là où l'oxygène justifie son rôle.
Glycogène et néoglucogenèse
Pourquoi c'est important. Le cerveau consomme ~120 g de glucose par jour et n'en stocke aucun. Entre les repas, l'organisme vit sur deux réserves de glucose aux propriétaires différents — et lors de la privation, il doit synthétiser du glucose de novo.
L'idée, avec une image. Glycogène : glucose ramifié polymère ($\alpha 1\to4$ chaînes, $\alpha 1\to6$ ramification toutes les ~8–12 résidus). Le foie stocke ~100 g — EXPORTE du glucose dans le sang ; le muscle stocke ~400 g — le conserve et l'oxyde localement.

Définitions avec des nombres. La glycogène phosphorylase clive $\alpha1\to4$ (phosphorolyse, sans dépense d'ATP) ; l'enzyme de déramification handles the $\alpha1\to6$ stubs. Gluconeogenesis reverses glycolysis uphill around its three gates — at the cost of 4 ATP + 2 GTP
- 2 NADH per glucose (6 high-energy phosphates, vs glycolysis's net son glucose-2-P est piégé et alimente la glycolyse — on ne peut pas exporter ce que l'on ne peut pas déphosphoryler. Le foie EN POSSÈDE la phosphatase : glycogène →
The derivation (why two banks). Muscle lacks glucose-6-phosphatase: its glucose-6-P is trapped and feeds glycolysis — you cannot export insuline déclenche la synthèse. Exemple résolu 1 — le budget nocturne. Glycogène hépatique ~6 g ≈ presence or absence assigns the organ's role; hormones aim it — glucagon (liver only) triggers breakdown, insulin triggers synthesis.
Worked example 1 — the overnight budget. Liver glycogen ~100 g ≈ 400 kcal; the brain needs ~120 g/day ≈ 480 kcal/day. The bank covers environ un jour d'utilisation du cerveau ✓ — après 12–24 h de jeûne, gluconéogenèse doit prendre le relais (acides aminés provenant des muscles, glycérine provenant des graisses, lactate via le cycle de Cori).
Exemple résolu 2 — lien clinique : le coureur qui ne peut pas taper sur la, banque.** (Fictionnel) crampes et urine foncée après un sprint : phosphorylase musculaire déficiente (profil McArdle) — le glycogène est stocké mais inaccessible, l'ATP chute, la myoglobine fuit, et la hausse attendue du lactate n'intervient jamais. Le bilan biologique IS le mécanisme : absence de lactate à effort maximal localise la rupture avant la porte glycolytique. ATP inatteignable, l'ATP chute, la myoglobine s'échappe et la hausse de lactate attendue n'arrive jamais. Le laboratoire est le mécanisme : absence de lactate avec un effort maximal localise la rupture avant la porte glycolytique.
Erreurs courantes. Traiter les deux stocks de glycogène comme un seul (glycogène musculaire ne devient jamais glucose sanguin). Compter la néoglucogenèse comme "glycolyse à l'envers gratuite" (elle coûte 6 phosphates à haute énergie). Placer des récepteurs au glucagon sur les muscles (il n'y en a aucun).
Résumé. Le foie ~100 g exporte (possède la phosphatase) ; le muscle ~400 g conserve (ne la possède pas) ; phosphorylase + débranchement brisent, synthase + enzyme de branchement construisent ; glucagon/insuline fixent le signe ; néoglucogenèse coûte 4 ATP + 2 GTP + 2 NADH par glucose.
Métabolisme lipidique
Pourquoi c'est important. Les graisses constituent l'entrepôt énergétique à long terme du corps — et son problème de trafic le plus lourd : insolubles dans l'eau, les lipides nécessitent un flotte de transport dont les défaillances sont la maladie la plus répandue au monde.
L'idée, avec une image. β-oxydation β dans les mitochondries : chaque cycle retire 2 C d'une acyl-CoA gras, produisant 1 acétyl-CoA + 1 FADH₂ + 1 NADH. Transport : lipoprotéines — chylomicrons (intestin → tissus), VLDL (foie → tissus), LDL (cholestérol vers tissus — le "mauvais" transporteur), HDL (cholestérol retour au foie — le "bon" transporteur).

La dérivation (le comptage du palmitate). Palmitate (C16) : $\beta$- oxydation nécessite $(16/2) - 1 = 7$ cycles → 8 acétyl-CoA + 7 FADH₂ + 7 NADH. Rendement : chaque acétyl vaut 10 équivalents via le cycle ($3\times2.5 + 1.5 + 1$), donc 8 acétyls donnent 80 ; les 7 FADH₂ produisent $7\times1.5 = 10.5$ et les 7 NADH produisent $7\times2.5 = 17.5$ ; moins 2 pour l'activation : 106 ATP par palmitate ✓ — contre 30–32 par glucose : les graisses rapportent plusieurs fois plus par carbone, car elles sont presque entièrement réduites.
Exemple résolu 1 — cétones, le carburant du cerveau. Jeûne prolongé : acétyl-CoA provenant de la β-oxydation dépasse le cycle de Krebs (OAA détourné vers (gluconéogenèse), le foie la condense donc en corps cétoniques (acétoacétate, β-hydroxybutyrate) et les exporte — hydrosolubles, traversée vers le cerveau, valant ~21.5 ATP par β-hydroxybutyrate. Au jour 3 les cétones fournissent environ un tiers de l'énergie cérébrale, et après plusieurs semaines jusqu'à deux tiers, épargnant la protéine musculaire ✓.
Exemple résolu 2 — lien clinique : le moteur sans étincelle. (Enfant fictif) hypoglycémie hypocétonique à jeun : une acyl-CoA déshydrogénase est déficiente, la β-oxydation stagne, aucune cétone ne peut être produite ET aucune ATP n'est disponible pour alimenter la gluconéogenèse — l'échec double explique BOTH les résultats de laboratoire. La signature diagnostique (basse glycémie AVEC basses cétones) est le mécanisme déduit d'une goutte de sang.
Erreurs fréquentes. Oublier le coût d'activation (−2 équivalents) dans le décompte des ATP. S'attendre à ce que le cerveau brûle des acides gras à chaîne longue (il oxyde très peu d'acide gras — les cétones sont son substitut). Appeler le LDL « cholestérol » (c'est la particule TRANSPORTRICE).
Résumé. β-oxydation : C16 → 8 acétyl-CoA + 7×(FADH₂+NADH) → 106 ATP net ; chylomicrons/VLDL sortent, LDL livrent, HDL retournent ; le jeûne transforme le foie en exportateur de cétones.
Métabolisme de l'azote et cycle de l'urée
Pourquoi c'est important. L'azote ne peut pas être stocké : chaque acide aminé non nécessaire aujourd'hui doit être déaminé aujourd'hui, et l'ammoniac libéré est neurotoxique à des concentrations micromolaires. Son élimination n'est pas une option — il s'agit d'un convoyeur en cinq étapes traversant deux compartiments.
L'idée, avec une image. Les groupes amino convergent vers le glutamate (transamination : acide aminé + α-cétoglutarate ⇌ cétone-acide + glutamate), puis la déshydrogénation oxydative libère NH₃ dans les mitochondries hépatiques. Le cycle de l'urée s'étend entre la mitochondrie et le cytosol : NH₃ + CO₂ → phosphate carbamoyl → citrulline → (cytosol) arginino- succinate → arginine → urée + ornithine régénérée.

Définitions avec chiffres. Urée : 2 N par molécule (un provenant de NH₃, un provenant de l'aspartate), coût 3 ATP (4 liaisons à haute énergie) par urée. L'ammoniaque sanguine normale est d'environ ~10–35 µmol/L — faible, car le cerveau ne possède pas de cycle de l'urée.
La dérivation (pourquoi le foie, pourquoi là). La détoxification de l'ammoniac doit se situer en amont de la circulation systémique : le sang portal provenant de l'intestin draine directement vers le foie, qui extrait les acides aminés et l'ammoniac lors du premier passage. Le cerveau et le muscle ne peuvent se permettre le coût du cycle — ils exportent l'azote sous forme de glutamine (le taxi à ammoniac) et d'alanine (le taxi à carbone et azote) pour que le foie puisse processus. La localisation est le système de sécurité.
Exemple résolu 1 — le registre quotidien. Un régime typique tourne ~70–100 g protéine/jour ≈ 11–16 g N ; excrété presque entièrement sous forme d'urée (25–35 g/jour). Vérification croisée : chaque urée transporte 2 azote (28 g de 60 g molécule = 47 % d'azote en masse) : 30 g urée × 0.47 ≈ 14 g azote ✓ — les urines correspond au régime.
Exemple résolu 2 — lien clinique : le convoyeur bloqué. (Nouveau-né fictif) léthargie puis coma après les premiers repas, ammoniaque très élevé, acide orotique dans l'urine : déficience en ornithine transcarbamylase — le cycle se bloque à l'étape 2, phosphate de carbamoyl s'échappe dans la pyrimidine (d'où l'orotate). La prise en charge basée sur le mécanisme suit le blocage : limiter l'apport azoté, capturer l'ammoniac, alimenter les voies alternatives — la biochimie écrit le protocole. Erreurs courantes. Écrire « l'urée élimine l'ammoniac » (elle élimine DEUX
Erreurs courantes. Écrire « l'urée élimine l'ammoniac » (elle élimine DEUX azote : NH₃ et groupe amino de l'aspartate). Attendez le cycle de l'urée Résumé. La transamination concentre le N vers le glutamate ; le cycle hépatique Oublier le coût en ATP (l'élimination de l'azote est coûteuse : 4 liaisons).
la glutamine et l'alanine sont les taxis ; hyperammonémie avec orotate. (2 compartments, 5 enzymes) builds urea at 3 ATP each, exporting 2 N; la glutamine et l'alanine sont les taxis ; hyperammonémie avec orotate pointe vers OTC.
Intégration du métabolisme : état nourri, jeûne et diabète
Pourquoi c'est important. Le métabolisme est un système avec un interrupteur. L'insuline et le glucagon sont le levier, les organes sont les engrenages, et le diabète est l' interrupteur bloqué — l'intégration la plus instructive en médecine.
L'idée, avec une image. État nourri (insuline élevée) : glucose dans toutes les cellules, glycogène saturé, carbone excédentaire vers les graisses. État de jeûne (glucagon élevé) : glycogénolyse hépatique (heures) → néoglucogenèse (jours) → cétogenèse (adaptation cérébrale). Un seul registre de carburant, trois régimes temporels.

Définitions numériques. Cerveau ~120 g de glucose/jour. Glycogène hépatique ~100 g (~ par jour). Les corps cétoniques couvrent environ un tiers de l'énergie cérébrale au jour 3 d'un jeûne, et jusqu'à deux tiers après plusieurs semaines. Ancre diagnostique : HbA1c ≥ 6.5 % indique un diabète — la glycation de l'hémoglobine s'accumule sur la vie ~120-jours du globule rouge, La dérivation (logique de l'interrupteur). Une seule variable — l'apport alimentaire arrive-t-il ?
— doit orienter cohéremment les flèches de TOUS les organes. Une paire hormonale avec — il faut aligner cohéremment toutes les flèches des organes. Une paire hormonale avec actions opposées sur les mêmes enzymes (PFK-2, glycogène synthase, phosphorylase, lipase) réalise cela : le glucagon élève le cAMP, donc PKA les phosphoryle ; l'insuline abaisse le cAMP (phosphodiestérase activée) et active les phosphatases, de sorte que les mêmes enzymes perdent leurs phosphates. L'élégance réside dans le fait qu'UN un signal, pas sept, empêche 4 organes de travailler en contradiction — et le diabète montre le coût des contradictions.
Exemple résolu 1 — la chronologie d'un jeûne. Heure 0 (fin du repas) : le glucose baisse. Heures 0–4 : carburant absorbé utilisé, insuline baisse. Heures 4–12 : glycogène hépatique épuisé. Heures 12–24 : réserves vides, gluconéogenèse s'accélère (acides aminés musculaires, glycérol, lactate). Jours 1–3 : protéines L'épargne commence lorsque les corps cétoniques augmentent. Jour 3 : environ un tiers de l'énergie cérébrale provenant des corps cétoniques ; semaines : jusqu'à deux tiers ✓ — chaque la transition est le mécanisme de l'unité précédente, temporellement calibrée.
Exemple résolu 2 — lien clinique : l'interrupteur bloqué, dans les deux sens. (Patient fictif) tableau type 1 : pas d'insuline, donc malgré une glycémie élevée les cellules lisent JEÛNE — les graisses s'écoulent, les cétones inondent (acidose, respiration de Kussmaul pour compenser), dégradation musculaire, urine perd glucose et eau (diurèse osmotique, soif). Chaque symptôme est un interrupteur lu par quatre organes. Tableau type 2 : insuline présente mais résisté — même bilan comptable, flèches plus douces, années au lieu d'heures.
Erreurs fréquentes. Réduire l'insuline à « abaisse le glucose » seulement (elle dicte la direction de TOUS les carburants). Traiter le besoin cérébral en glucose comme négociable (ketones only partly substitute, and take days). Confusing HbA1c (3-month moyenne) avec une glycémie (minutes).
Résumé. Insuline/glucagon = un levier sur tous les organes ; à l'état d'absorption → stockage, à jeun → glycogénolyse → néoglucogenèse → cétones sur une ~24 h / 3 jour horloge ; HbA1c ≥ 6.5 % intègre le fil chronologique ; la cétose diabétique est le métabolisme de jeûne fonctionnant avec une hyperglycémie.